Whole-genome characterization and phenotypic antimicrobial resistance of Staphylococcus aureus isolates from children with food poisoning in KazakhstanПолногеномная характеристика и фенотипическая антибиотикорезистентность изолятов Staphylococcus aureus от детей с пищевым отравлением в КазахстанеҚазақстанда тамақтан уланған балалардан бөлініп алынған Staphylococcus aureus изоляттарының толық геномдық сипаттамасы және фенотиптік микробқа қарсы төзімділігі
Five clinical isolates from children, their resistance phenotype and genome, and their phylogenetic position among food isolates circulating in Kazakhstan.Пять клинических изолятов от детей, их фенотип устойчивости и геном, а также филогенетическое положение среди пищевых изолятов, циркулирующих в Казахстане.Балалардан бөлінген бес клиникалық изолят, олардың төзімділік фенотипі мен геномы және Қазақстанда айналымдағы тағамдық изоляттар арасындағы филогенетикалық орны.
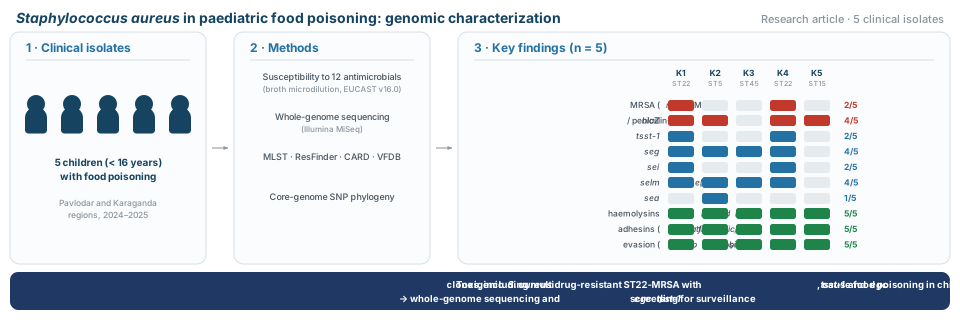
Graphical abstract. Study design and main findings: five clinical S. aureus isolates from children with food poisoning, their phenotypic resistance, and key genetic determinants of resistance and virulence.
Графический абстракт. Дизайн исследования и основные результаты: пять клинических изолятов S. aureus от детей с пищевым отравлением, их фенотипическая устойчивость и ключевые генетические детерминанты резистентности и вирулентности.
Графикалық аңдатпа. Зерттеу дизайны және негізгі нәтижелер: тамақтан уланған балалардан бөлінген бес клиникалық S. aureus изоляты, олардың фенотиптік төзімділігі және төзімділік пен вируленттіліктің негізгі генетикалық детерминанттары.
AbstractАннотацияАңдатпа
Background. Staphylococcal food poisoning is one of the leading causes of foodborne intoxication in children worldwide. In Kazakhstan, Staphylococcus aureus strains responsible for such poisoning have so far been studied mainly by phenotypic methods and by PCR detection of individual genes, whereas whole-genome sequencing data are lacking. This study aimed to perform whole-genome and phenotypic characterization of S. aureus isolates recovered from children with food poisoning.Введение. Стафилококковое пищевое отравление — одна из ведущих причин пищевых интоксикаций у детей во всём мире. В Казахстане штаммы Staphylococcus aureus, вызывающие такие отравления, до сих пор изучались преимущественно фенотипическими методами и ПЦР-выявлением отдельных генов, тогда как данные полногеномного секвенирования отсутствуют. Целью работы была полногеномная и фенотипическая характеристика изолятов S. aureus, выделенных от детей с пищевым отравлением.Кіріспе. Стафилококктық тамақтан улану — бүкіл әлемде балалардағы тағамдық интоксикацияның жетекші себептерінің бірі. Қазақстанда мұндай уланулар тудыратын Staphylococcus aureus штаммдары осы уақытқа дейін негізінен фенотиптік әдістермен және жекелеген гендерді ПТР арқылы анықтаумен зерттелді, ал толық геномдық секвенирлеу деректері жоқ. Жұмыстың мақсаты — тамақтан уланған балалардан бөлінген S. aureus изоляттарының толық геномдық және фенотиптік сипаттамасы.
Methods. Five clinical isolates obtained in 2024–2025 from hospitalized children under 16 years of age (Pavlodar and Karaganda regions, Kazakhstan) were studied. Antimicrobial susceptibility was determined by broth microdilution and interpreted according to the European Committee on Antimicrobial Susceptibility Testing (EUCAST) criteria, version 16.0. Whole-genome sequencing, multilocus sequence typing, screening for antimicrobial resistance and virulence genes, and phylogenetic analysis were performed.Методы. Исследованы пять клинических изолятов, полученных в 2024–2025 годах от госпитализированных детей младше 16 лет (Павлодарская и Карагандинская области, Казахстан). Чувствительность к антимикробным препаратам определяли методом микроразведений в бульоне и интерпретировали по критериям Европейского комитета по тестированию антимикробной чувствительности (EUCAST), версия 16.0. Выполнены полногеномное секвенирование, мультилокусное сиквенс-типирование, поиск генов резистентности и вирулентности и филогенетический анализ.Әдістер. 2024–2025 жылдары 16 жасқа дейінгі ауруханаға жатқызылған балалардан (Павлодар және Қарағанды облыстары, Қазақстан) алынған бес клиникалық изолят зерттелді. Микробқа қарсы препараттарға сезімталдық сорпада микросұйылту әдісімен анықталып, Микробқа қарсы сезімталдықты тестілеу жөніндегі еуропалық комитеттің (EUCAST) 16.0 нұсқасындағы критерийлері бойынша түсіндірілді. Толық геномдық секвенирлеу, мультилокустық секвенс-типтеу, төзімділік пен вируленттілік гендерін іздеу және филогенетикалық талдау жүргізілді.
Results. The five clinical isolates belonged to four sequence types (STs): ST22 (n = 2), ST5, ST45, and ST15. Resistance to penicillin was detected in 4/5 isolates (80%), to cefoxitin in 2/5 (40%), and to linezolid in 1/5 (20%). Concordance between blaZ and penicillin resistance and between mecA and cefoxitin resistance was complete. Both methicillin-resistant ST22 isolates were multidrug-resistant and carried lnu(A) and tsst-1. Hemolysin genes were detected in all isolates.Результаты. Пять клинических изолятов относились к четырём сиквенс-типам (ST): ST22 (n = 2), ST5, ST45 и ST15. Устойчивость к пенициллину выявлена у 4/5 изолятов (80%), к цефокситину — у 2/5 (40%), к линезолиду — у 1/5 (20%). Соответствие между blaZ и устойчивостью к пенициллину, а также между mecA и устойчивостью к цефокситину было полным. Оба метициллинорезистентных изолята ST22 были полирезистентными и несли lnu(A) и tsst-1. Гены гемолизинов обнаружены у всех изолятов.Нәтижелер. Бес клиникалық изолят төрт секвенс-типке (ST) жатты: ST22 (n = 2), ST5, ST45 және ST15. Пенициллинге төзімділік 4/5 изолятта (80%), цефокситинге — 2/5 (40%), линезолидке — 1/5 (20%) анықталды. blaZ мен пенициллинге төзімділік арасындағы, сондай-ақ mecA мен цефокситинге төзімділік арасындағы сәйкестік толық болды. Метициллинге төзімді екі ST22 изоляты да көпдәрілік төзімді болып, lnu(A) және tsst-1 гендерін алып жүрді. Гемолизин гендері барлық изоляттарда табылды.
Conclusions. Toxigenic S. aureus lineages associated with food poisoning in children, including multidrug-resistant MRSA ST22, circulate in the food chain of Kazakhstan. These findings support the integration of whole-genome sequencing and genetic screening for enterotoxin gene cluster (egc) genes and tsst-1 into food safety surveillance.Заключение. Токсигенные линии S. aureus, связанные с пищевыми отравлениями у детей, включая полирезистентный MRSA ST22, циркулируют в пищевой цепи Казахстана. Полученные данные обосновывают включение полногеномного секвенирования и генетического скрининга генов кластера энтеротоксинов (egc) и tsst-1 в надзор за безопасностью пищевых продуктов.Қорытынды. Балалардағы тамақтан улануға байланысты токсигендік S. aureus желілері, оның ішінде көпдәрілік төзімді MRSA ST22, Қазақстанның азық-түлік тізбегінде айналымда. Алынған деректер толық геномдық секвенирлеуді және энтеротоксиндер кластері (egc) гендері мен tsst-1 генетикалық скринингін азық-түлік қауіпсіздігін қадағалауға енгізуді негіздейді.
KeywordsКлючевые словаТүйін сөздер
IntroductionВведениеКіріспе
Staphylococcus aureus is a Gram-positive, facultatively anaerobic coccus. It is part of the normal microbiota of humans and animals and, at the same time, one of the leading causative agents of food poisoning [1]. A substantial proportion of the population is asymptomatically colonized by S. aureus. The pathogen is transmitted through contact with carriers and infected animals, as well as through contaminated food. Staphylococcal food poisoning (SFP) is caused not by the bacteria themselves but by enterotoxins accumulated in the food. Consequently, the disease has a rapid onset, within a few hours of ingestion, and manifests as vomiting, abdominal pain, and diarrhea. Children are particularly vulnerable, and institutional catering in childcare and school settings creates conditions for large outbreaks. For example, in 2025 an outbreak among high school students in Zhejiang Province, China, was caused by an S. aureus strain carrying the sea, seq, and sek genes [2].Staphylococcus aureus — грамположительный факультативно-анаэробный кокк. Он входит в состав нормальной микробиоты человека и животных и одновременно является одним из ведущих возбудителей пищевых отравлений [1]. Значительная доля населения бессимптомно колонизирована S. aureus. Возбудитель передаётся при контакте с носителями и инфицированными животными, а также через контаминированные пищевые продукты. Стафилококковое пищевое отравление (СПО) вызывают не сами бактерии, а энтеротоксины, накопившиеся в пище. Поэтому заболевание начинается быстро, в течение нескольких часов после приёма пищи, и проявляется рвотой, болью в животе и диареей. Особенно уязвимы дети, а организованное питание в детских и школьных учреждениях создаёт условия для крупных вспышек. Так, в 2025 году вспышка среди старшеклассников в провинции Чжэцзян (Китай) была вызвана штаммом S. aureus, несущим гены sea, seq и sek [2].Staphylococcus aureus — грамоң, факультативті анаэробты кокк. Ол адам мен жануарлардың қалыпты микробиотасының құрамына кіреді әрі сонымен қатар тамақтан улануды тудыратын жетекші қоздырғыштардың бірі болып табылады [1]. Халықтың едәуір бөлігі S. aureus бактериясымен симптомсыз колонизацияланған. Қоздырғыш тасымалдаушылармен және жұқтырған жануарлармен жанасу арқылы, сондай-ақ ластанған азық-түлік арқылы беріледі. Стафилококктық тамақтан улануды (СТУ) бактериялардың өзі емес, тағамда жиналған энтеротоксиндер тудырады. Сондықтан ауру тамақ ішкеннен кейін бірнеше сағат ішінде жылдам басталып, құсумен, іштің ауыруымен және диареямен көрінеді. Әсіресе балалар осал, ал балабақша мен мектептегі ұйымдастырылған тамақтану ірі өршулерге жағдай жасайды. Мысалы, 2025 жылы Қытайдың Чжэцзян провинциясындағы жоғары сынып оқушылары арасындағы өршуді sea, seq және sek гендерін алып жүретін S. aureus штаммы тудырды [2].
Staphylococcal enterotoxins and toxic shock syndrome toxin-1 (TSST-1) act as superantigens, triggering a «cytokine storm» that leads to tissue damage, increased vascular permeability, and multiple organ failure [3]. In addition to superantigens, S. aureus produces proteases, hemolysins, leukocidins, and immunomodulatory factors. The genes encoding many of these toxins are located on plasmids, prophages, and pathogenicity islands and can be transferred horizontally [4]. Given the role of these virulence factors in food poisoning outbreaks, genomic surveillance of these determinants has become a key tool for assessing the pathogenic potential of S. aureus [5].Стафилококковые энтеротоксины и токсин синдрома токсического шока-1 (TSST-1) действуют как суперантигены, запуская «цитокиновый шторм», который приводит к повреждению тканей, повышению проницаемости сосудов и полиорганной недостаточности [3]. Помимо суперантигенов, S. aureus продуцирует протеазы, гемолизины, лейкоцидины и иммуномодулирующие факторы. Гены многих из этих токсинов расположены на плазмидах, профагах и островах патогенности и могут передаваться горизонтально [4]. Учитывая роль этих факторов вирулентности во вспышках пищевых отравлений, геномный надзор за данными детерминантами стал ключевым инструментом оценки патогенного потенциала S. aureus [5].Стафилококктық энтеротоксиндер мен уытты шок синдромының токсині-1 (TSST-1) суперантиген ретінде әрекет етіп, тіндердің зақымдануына, тамыр өткізгіштігінің артуына және көпмүшелік жеткіліксіздікке әкелетін «цитокиндік дауылды» іске қосады [3]. Суперантигендерден басқа S. aureus протеазалар, гемолизиндер, лейкоцидиндер және иммундық реттеуші факторлар өндіреді. Осы токсиндердің көпшілігін кодтайтын гендер плазмидаларда, профагтарда және патогендік аралдарда орналасқан әрі көлденең берілуі мүмкін [4]. Бұл вируленттілік факторларының тамақтан улану өршулеріндегі рөлін ескере отырып, аталған детерминанттарға геномдық қадағалау S. aureus патогендік әлеуетін бағалаудың негізгі құралына айналды [5].
SFP has traditionally been attributed to the classical enterotoxins SEA–SEE, and commercial immunochemical assays target precisely these toxins. However, recent studies have shown that outbreaks can be caused by strains carrying only genes of the enterotoxin gene cluster (egc) — seg, sei, selm, seln, selo, and selu — in the absence of classical enterotoxins. For instance, poisoning of 46 people in China was caused by an egc-positive strain of the novel sequence type ST7591 (CC72) [6]. Such cases escape routine diagnostics, and genetic methods are required for their detection.СПО традиционно связывали с классическими энтеротоксинами SEA–SEE, и коммерческие иммунохимические тест-системы нацелены именно на эти токсины. Однако недавние исследования показали, что вспышки могут вызывать штаммы, несущие только гены кластера энтеротоксинов (egc) — seg, sei, selm, seln, selo и selu — при отсутствии классических энтеротоксинов. Так, отравление 46 человек в Китае было вызвано egc-положительным штаммом нового сиквенс-типа ST7591 (CC72) [6]. Такие случаи ускользают от рутинной диагностики, и для их выявления необходимы генетические методы.СТУ дәстүрлі түрде SEA–SEE классикалық энтеротоксиндерімен байланыстырылды, ал коммерциялық иммунохимиялық тест-жүйелер дәл осы токсиндерге бағытталған. Алайда соңғы зерттеулер өршулерді классикалық энтеротоксиндер болмағанда да, тек энтеротоксиндер кластері (egc) гендерін — seg, sei, selm, seln, selo және selu — алып жүретін штаммдар тудыруы мүмкін екенін көрсетті. Мысалы, Қытайда 46 адамның улануын жаңа ST7591 (CC72) секвенс-типінің egc-оң штаммы тудырды [6]. Мұндай жағдайлар күнделікті диагностикадан тыс қалады, оларды анықтау үшін генетикалық әдістер қажет.
At the same time, antimicrobial resistance (AMR) in S. aureus is of growing concern. S. aureus is one of the six ESKAPE pathogens (Enterococcus, Staphylococcus, Klebsiella, Acinetobacter, Pseudomonas, and Enterobacter), and methicillin-resistant S. aureus (MRSA) accounted for more than 100,000 deaths in 2019 — more than any other pathogen-drug combination [7].Одновременно растёт обеспокоенность антимикробной резистентностью (АМР) S. aureus. S. aureus входит в число шести патогенов ESKAPE (Enterococcus, Staphylococcus, Klebsiella, Acinetobacter, Pseudomonas и Enterobacter), а метициллинорезистентный S. aureus (MRSA) в 2019 году стал причиной более 100 000 смертей — больше, чем любая другая комбинация «возбудитель — препарат» [7].Сонымен қатар S. aureus микробқа қарсы төзімділігіне (МҚТ) алаңдаушылық артып келеді. S. aureus алты ESKAPE патогенінің қатарына кіреді (Enterococcus, Staphylococcus, Klebsiella, Acinetobacter, Pseudomonas және Enterobacter), ал метициллинге төзімді S. aureus (MRSA) 2019 жылы 100 000-нан астам өлімнің себебі болды — бұл кез келген басқа «қоздырғыш — препарат» үйлесімінен көп [7].
Whole-genome sequencing (WGS) now provides, in a single analysis, a complete profile of enterotoxin, resistance, and virulence genes and establishes the relatedness of isolates at high resolution [8]. WGS-based comparison of patient isolates with food isolates makes it possible to identify the source of infection.Полногеномное секвенирование (ПГС) позволяет в одном анализе получить полный профиль генов энтеротоксинов, резистентности и вирулентности и установить родство изолятов с высоким разрешением [8]. Сравнение изолятов от пациентов с пищевыми изолятами на основе ПГС даёт возможность установить источник инфекции.Толық геномдық секвенирлеу (ТГС) бір талдауда энтеротоксин, төзімділік және вируленттілік гендерінің толық профилін алуға әрі изоляттардың туыстығын жоғары ажыратымдылықпен анықтауға мүмкіндік береді [8]. ТГС негізінде науқастардан алынған изоляттарды тағамдық изоляттармен салыстыру инфекция көзін анықтауға жол ашады.
We previously used WGS to characterize 42 isolates recovered from foods in Northern Kazakhstan [9]. Apart from this work on food isolates, studies of S. aureus in Kazakhstan have been limited to phenotypic typing and PCR detection of individual resistance and toxin genes, and no whole-genome data on strains causing food poisoning in children have been published. The aim of the present study was therefore to characterize the genomic profiles and phenotypic antimicrobial susceptibility of S. aureus isolates recovered from cases of food poisoning in children in Kazakhstan.Ранее мы использовали ПГС для характеристики 42 изолятов, выделенных из пищевых продуктов Северного Казахстана [9]. Помимо этой работы по пищевым изолятам, исследования S. aureus в Казахстане ограничивались фенотипическим типированием и ПЦР-выявлением отдельных генов резистентности и токсинов; полногеномные данные о штаммах, вызывающих пищевые отравления у детей, не публиковались. Поэтому целью настоящего исследования была характеристика геномных профилей и фенотипической антимикробной чувствительности изолятов S. aureus, выделенных при случаях пищевого отравления у детей в Казахстане.Бұған дейін біз ТГС-ті Солтүстік Қазақстанның азық-түлік өнімдерінен бөлінген 42 изолятты сипаттау үшін қолдандық [9]. Тағамдық изоляттар бойынша осы жұмыстан басқа, Қазақстандағы S. aureus зерттеулері фенотиптік типтеумен және жекелеген төзімділік пен токсин гендерін ПТР арқылы анықтаумен шектелді; балалардағы тамақтан улануды тудыратын штаммдар туралы толық геномдық деректер жарияланбаған. Сондықтан осы зерттеудің мақсаты — Қазақстанда балалардың тамақтан улану жағдайларынан бөлінген S. aureus изоляттарының геномдық профильдері мен фенотиптік микробқа қарсы сезімталдығын сипаттау.
Materials and MethodsМатериалы и методыМатериалдар мен әдістер
Study IsolatesИзоляты исследованияЗерттеу изоляттары
The study included five clinical S. aureus isolates (K1–K5) obtained between June 2024 and June 2025 from children under 16 years of age hospitalized with clinically and laboratory-confirmed SFP (acute gastroenteritis with isolation of S. aureus from feces and vomitus). Each isolate was obtained from a different patient. The isolates were submitted to the laboratory by the Departments of Sanitary and Epidemiological Control of the Pavlodar and Karaganda regions as part of routine epidemiological investigations of food poisoning cases. Samples were transported in sealed insulated containers at 4 °C, and microbiological analysis was performed within 24 h of collection.В исследование включены пять клинических изолятов S. aureus (K1–K5), полученных с июня 2024 по июнь 2025 года от детей младше 16 лет, госпитализированных с клинически и лабораторно подтверждённым СПО (острый гастроэнтерит с выделением S. aureus из фекалий и рвотных масс). Каждый изолят получен от отдельного пациента. Изоляты были переданы в лабораторию департаментами санитарно-эпидемиологического контроля Павлодарской и Карагандинской областей в рамках рутинных эпидемиологических расследований случаев пищевых отравлений. Образцы транспортировали в герметичных термоконтейнерах при 4 °C, микробиологический анализ выполняли в течение 24 ч после отбора.Зерттеуге 2024 жылдың маусымы мен 2025 жылдың маусымы аралығында клиникалық және зертханалық расталған СТУ-мен (нәжіс пен құсықтан S. aureus бөлінген жедел гастроэнтерит) ауруханаға жатқызылған 16 жасқа дейінгі балалардан алынған бес клиникалық S. aureus изоляты (K1–K5) енгізілді. Әрбір изолят жеке науқастан алынды. Изоляттарды зертханаға Павлодар және Қарағанды облыстарының санитариялық-эпидемиологиялық бақылау департаменттері тамақтан улану жағдайларын күнделікті эпидемиологиялық тексеру аясында тапсырды. Үлгілер 4 °C температурада герметикалық термоконтейнерлерде тасымалданып, микробиологиялық талдау іріктеуден кейін 24 сағат ішінде орындалды.
For phylogenetic comparison, we used the genomes of 42 S. aureus isolates previously recovered by our group from raw and ready-to-eat foods (Astana and the Kostanay region) during the same period [9]. Data on the food isolates were used solely to determine the phylogenetic position of the clinical isolates.Для филогенетического сравнения использованы геномы 42 изолятов S. aureus, ранее выделенных нашей группой из сырых и готовых к употреблению продуктов (Астана и Костанайская область) в тот же период [9]. Данные по пищевым изолятам применялись исключительно для определения филогенетического положения клинических изолятов.Филогенетикалық салыстыру үшін сол кезеңде біздің топ шикі және дайын тағамдардан (Астана және Қостанай облысы) бөліп алған 42 S. aureus изолятының геномдары пайдаланылды [9]. Тағамдық изоляттар бойынша деректер тек клиникалық изоляттардың филогенетикалық орнын анықтау үшін қолданылды.
Isolation and Identification of S. aureusВыделение и идентификация S. aureusS. aureus бөліп алу және идентификациялау
Nutrient broth and Luria–Bertani broth (HiMedia Laboratories, Mumbai, India) were used for primary enrichment, and meat-peptone agar and Luria–Bertani agar (HiMedia Laboratories, Mumbai, India) for cultivation. Selective isolation was performed on Chromatic Staph. aureus chromogenic medium (Liofilchem, Teramo, Italy), on which S. aureus formed purple colonies, and on Baird-Parker agar (HiMedia Laboratories, Mumbai, India), on which typical black colonies surrounded by a clear zone were observed. Isolates were also characterized by Gram staining and hemolysis type on blood agar.Для первичного обогащения использовали питательный бульон и бульон Лурия–Бертани (HiMedia Laboratories, Мумбаи, Индия), для культивирования — мясо-пептонный агар и агар Лурия–Бертани (HiMedia Laboratories, Мумбаи, Индия). Селективное выделение проводили на хромогенной среде Chromatic Staph. aureus (Liofilchem, Терамо, Италия), на которой S. aureus образует фиолетовые колонии, и на агаре Байрда–Паркера (HiMedia Laboratories, Мумбаи, Индия), где наблюдали типичные чёрные колонии, окружённые зоной просветления. Изоляты также характеризовали по окраске по Граму и типу гемолиза на кровяном агаре.Бастапқы байыту үшін қоректік сорпа мен Лурия–Бертани сорпасы (HiMedia Laboratories, Мумбай, Үндістан), өсіру үшін ет-пептонды агар мен Лурия–Бертани агары (HiMedia Laboratories, Мумбай, Үндістан) пайдаланылды. Селективті бөліп алу S. aureus күлгін колониялар түзетін Chromatic Staph. aureus хромогендік ортасында (Liofilchem, Терамо, Италия) және типтік қара колониялар мөлдір аймақпен қоршалған Байрд–Паркер агарында (HiMedia Laboratories, Мумбай, Үндістан) жүргізілді. Изоляттар сондай-ақ Грам бойынша боялуы және қанды агардағы гемолиз түрі бойынша сипатталды.
Species identification was confirmed by matrix-assisted laser desorption/ionization time-of-flight mass spectrometry (MALDI-TOF MS) using a MALDI Biotyper system with a microflex LT mass spectrometer (Bruker Daltonik, Bremen, Germany). Colonies were spotted onto an MSP 96 steel target and overlaid with 1 µL of matrix (saturated α-cyano-4-hydroxycinnamic acid in 50% acetonitrile and 2.5% trifluoroacetic acid). Spectra were acquired in linear positive mode over the range of 2,000–20,000 Da; calibration was performed with the Bacterial Test Standard (Bruker Daltonik, Bremen, Germany). Identification was carried out in MALDI Biotyper RTC 4.0 software with the BDAL-12.0.0.0 library; a log(score) ≥ 2.0 was considered reliable. Species identity was additionally confirmed by sequencing a 16S rRNA gene fragment amplified with primers 8F (5′-AGAGTTTGATCCTGGCTCAG-3′) and 806R (5′-GGACTACCAGGGTATCTAAT-3′) on an ABI 3730xl Genetic Analyzer (Applied Biosystems, Foster City, CA, USA), followed by BLAST analysis against GenBank.Видовую принадлежность подтверждали методом времяпролётной масс-спектрометрии с матрично-активированной лазерной десорбцией/ионизацией (MALDI-TOF MS) на системе MALDI Biotyper с масс-спектрометром microflex LT (Bruker Daltonik, Бремен, Германия). Колонии наносили на стальную мишень MSP 96 и покрывали 1 µл матрицы (насыщенная α-циано-4-гидроксикоричная кислота в 50% ацетонитриле и 2,5% трифторуксусной кислоте). Спектры регистрировали в линейном положительном режиме в диапазоне 2000–20 000 Да; калибровку выполняли с использованием Bacterial Test Standard (Bruker Daltonik, Бремен, Германия). Идентификацию проводили в программе MALDI Biotyper RTC 4.0 с библиотекой BDAL-12.0.0.0; достоверным считали log(score) ≥ 2,0. Видовую принадлежность дополнительно подтверждали секвенированием фрагмента гена 16S рРНК, амплифицированного с праймерами 8F (5′-AGAGTTTGATCCTGGCTCAG-3′) и 806R (5′-GGACTACCAGGGTATCTAAT-3′) на приборе ABI 3730xl Genetic Analyzer (Applied Biosystems, Фостер-Сити, Калифорния, США) с последующим BLAST-анализом по GenBank.Түрлік тиесілілік матрицамен белсендірілген лазерлік десорбция/иондау арқылы ұшу уақытын өлшейтін масс-спектрометрия (MALDI-TOF MS) әдісімен microflex LT масс-спектрометрі бар MALDI Biotyper жүйесінде (Bruker Daltonik, Бремен, Германия) расталды. Колониялар MSP 96 болат нысанасына жағылып, үстіне 1 µл матрица (50% ацетонитрил мен 2,5% трифторсірке қышқылындағы қаныққан α-циано-4-гидроксикоричный қышқыл) құйылды. Спектрлер сызықтық оң режимде 2000–20 000 Да ауқымында тіркелді; калибрлеу Bacterial Test Standard көмегімен (Bruker Daltonik, Бремен, Германия) жүргізілді. Идентификация BDAL-12.0.0.0 кітапханасы бар MALDI Biotyper RTC 4.0 бағдарламасында орындалды; log(score) ≥ 2,0 сенімді деп саналды. Түрлік тиесілілік қосымша 8F (5′-AGAGTTTGATCCTGGCTCAG-3′) және 806R (5′-GGACTACCAGGGTATCTAAT-3′) праймерлерімен амплификацияланған 16S рРНҚ генінің фрагментін ABI 3730xl Genetic Analyzer аспабында (Applied Biosystems, Фостер-Сити, Калифорния, АҚШ) секвенирлеу және GenBank бойынша BLAST-талдау арқылы расталды.
Antimicrobial Susceptibility TestingОпределение антимикробной чувствительностиМикробқа қарсы сезімталдықты анықтау
In vitro susceptibility was determined by broth microdilution using the OCHA Sensilla Test Staphy kit (Erba Lachema, Brno, Czech Republic) according to the manufacturer's instructions. Twelve agents were tested: β-lactams (penicillin, cefoxitin), macrolides (erythromycin), lincosamides (clindamycin), oxazolidinones (linezolid), phenicols (chloramphenicol), tetracyclines (tetracycline), fluoroquinolones (ciprofloxacin), folate pathway antagonists (trimethoprim/sulfamethoxazole), aminoglycosides (gentamicin), glycopeptides (vancomycin), and nitrofurans (nitrofurantoin). Minimum inhibitory concentrations (MICs) were read after incubation at 35 °C for 20 h (24 h for vancomycin). Results were interpreted according to the European Committee on Antimicrobial Susceptibility Testing (EUCAST) clinical breakpoints for S. aureus, version 16.0 (1 January 2026). S. aureus ATCC 29213 was used as the quality control reference strain.Чувствительность in vitro определяли методом микроразведений в бульоне с использованием набора OCHA Sensilla Test Staphy (Erba Lachema, Брно, Чехия) в соответствии с инструкцией производителя. Тестировали двенадцать препаратов: β-лактамы (пенициллин, цефокситин), макролиды (эритромицин), линкозамиды (клиндамицин), оксазолидиноны (линезолид), фениколы (хлорамфеникол), тетрациклины (тетрациклин), фторхинолоны (ципрофлоксацин), антагонисты фолатного пути (триметоприм/сульфаметоксазол), аминогликозиды (гентамицин), гликопептиды (ванкомицин) и нитрофураны (нитрофурантоин). Минимальные ингибирующие концентрации (МИК) учитывали после инкубации при 35 °C в течение 20 ч (24 ч для ванкомицина). Результаты интерпретировали по клиническим пограничным значениям Европейского комитета по тестированию антимикробной чувствительности (EUCAST) для S. aureus, версия 16.0 (1 января 2026 г.). В качестве контрольного штамма использовали S. aureus ATCC 29213.In vitro сезімталдық өндіруші нұсқауына сәйкес OCHA Sensilla Test Staphy жиынтығын (Erba Lachema, Брно, Чехия) пайдалана отырып, сорпада микросұйылту әдісімен анықталды. Он екі препарат тексерілді: β-лактамдар (пенициллин, цефокситин), макролидтер (эритромицин), линкозамидтер (клиндамицин), оксазолидинондар (линезолид), фениколдар (хлорамфеникол), тетрациклиндер (тетрациклин), фторхинолондар (ципрофлоксацин), фолат жолының антагонистері (триметоприм/сульфаметоксазол), аминогликозидтер (гентамицин), гликопептидтер (ванкомицин) және нитрофурандар (нитрофурантоин). Ең аз тежеуші концентрациялар (ЕТК) 35 °C температурада 20 сағат (ванкомицин үшін 24 сағат) инкубациядан кейін есепке алынды. Нәтижелер Микробқа қарсы сезімталдықты тестілеу жөніндегі еуропалық комитеттің (EUCAST) S. aureus үшін 16.0 нұсқасындағы (2026 жылғы 1 қаңтар) клиникалық шекаралық мәндері бойынша түсіндірілді. Бақылау штаммы ретінде S. aureus ATCC 29213 пайдаланылды.
Isolates resistant to at least one agent in three or more antimicrobial categories were classified as multidrug-resistant (MDR) according to international criteria [10]. In accordance with these criteria, penicillins, anti-staphylococcal β-lactams (cefoxitin), and oxazolidinones were treated as separate categories, and all MRSA isolates were classified as MDR regardless of their resistance to other agents [10]. The multiple antibiotic resistance (MAR) index was calculated as the ratio of the number of agents to which an isolate was resistant to the total number of agents tested [11].Изоляты, устойчивые хотя бы к одному препарату из трёх и более антимикробных категорий, классифицировали как полирезистентные (MDR) согласно международным критериям [10]. В соответствии с этими критериями пенициллины, антистафилококковые β-лактамы (цефокситин) и оксазолидиноны рассматривали как отдельные категории, а все изоляты MRSA относили к MDR независимо от их устойчивости к другим препаратам [10]. Индекс множественной антибиотикорезистентности (MAR) рассчитывали как отношение числа препаратов, к которым изолят устойчив, к общему числу тестированных препаратов [11].Үш және одан көп микробқа қарсы санаттың кем дегенде бір препаратына төзімді изоляттар халықаралық критерийлерге сәйкес көпдәрілік төзімді (MDR) деп жіктелді [10]. Осы критерийлерге сәйкес пенициллиндер, антистафилококктық β-лактамдар (цефокситин) және оксазолидинондар жеке санаттар ретінде қаралды, ал барлық MRSA изоляттары басқа препараттарға төзімділігіне қарамастан MDR қатарына жатқызылды [10]. Көптік антибиотикке төзімділік (MAR) индексі изолят төзімді препараттар санының тексерілген препараттардың жалпы санына қатынасы ретінде есептелді [11].
Whole-Genome Sequencing and Bioinformatic AnalysisПолногеномное секвенирование и биоинформатический анализТолық геномдық секвенирлеу және биоинформатикалық талдау
DNA was extracted using the cetyltrimethylammonium bromide (CTAB)/NaCl method. DNA quantity was assessed with a NanoDrop 1000 spectrophotometer (Thermo Fisher Scientific, Wilmington, DE, USA) and a Qubit 2.0 fluorometer (Invitrogen, Carlsbad, CA, USA), and DNA quality by electrophoresis in a 1% agarose gel. Libraries were prepared with the Collibri PS DNA Library Prep Kit for Illumina (Invitrogen, Carlsbad, CA, USA), and sequencing was performed on an Illumina MiSeq instrument (Illumina, San Diego, CA, USA) using the MiSeq Reagent Kit v3 (600 cycles, paired-end reads).ДНК выделяли методом с цетилтриметиламмония бромидом (CTAB)/NaCl. Количество ДНК оценивали на спектрофотометре NanoDrop 1000 (Thermo Fisher Scientific, Уилмингтон, Делавэр, США) и флуориметре Qubit 2.0 (Invitrogen, Карлсбад, Калифорния, США), качество ДНК — электрофорезом в 1% агарозном геле. Библиотеки готовили с помощью набора Collibri PS DNA Library Prep Kit for Illumina (Invitrogen, Карлсбад, Калифорния, США), секвенирование выполняли на приборе Illumina MiSeq (Illumina, Сан-Диего, Калифорния, США) с набором MiSeq Reagent Kit v3 (600 циклов, парно-концевые прочтения).ДНҚ цетилтриметиламмоний бромиді (CTAB)/NaCl әдісімен бөлініп алынды. ДНҚ мөлшері NanoDrop 1000 спектрофотометрінде (Thermo Fisher Scientific, Уилмингтон, Делавэр, АҚШ) және Qubit 2.0 флуориметрінде (Invitrogen, Карлсбад, Калифорния, АҚШ), ДНҚ сапасы 1% агароза гелінде электрофорез арқылы бағаланды. Кітапханалар Collibri PS DNA Library Prep Kit for Illumina жиынтығымен (Invitrogen, Карлсбад, Калифорния, АҚШ) дайындалып, секвенирлеу MiSeq Reagent Kit v3 жиынтығымен (600 цикл, жұптық-шеттік оқулар) Illumina MiSeq аспабында (Illumina, Сан-Диего, Калифорния, АҚШ) орындалды.
Read quality was assessed with FastQC v0.11.9, and adapters and low-quality bases were removed with Trim Galore v0.6.5. De novo assembly was performed with Unicycler v0.4.8 (minimum contig length 300 bp, minimum coverage 5×) with two rounds of Pilon polishing (mapping with Bowtie2 v2.4.4 and processing with SAMtools v1.20). Assembly metrics were evaluated with QUAST v5.2.0, and annotation was performed with RASTtk; the presence of plasmid replicons was also assessed during annotation.Качество прочтений оценивали в FastQC v0.11.9, адаптеры и низкокачественные основания удаляли в Trim Galore v0.6.5. Сборку de novo выполняли в Unicycler v0.4.8 (минимальная длина контига 300 п.н., минимальное покрытие 5×) с двумя раундами полировки Pilon (картирование Bowtie2 v2.4.4, обработка SAMtools v1.20). Метрики сборки оценивали в QUAST v5.2.0, аннотацию проводили в RASTtk; при аннотации также оценивали наличие плазмидных репликонов.Оқулар сапасы FastQC v0.11.9 бағдарламасында бағаланып, адаптерлер мен сапасы төмен нуклеотидтер Trim Galore v0.6.5 көмегімен жойылды. De novo жинау Unicycler v0.4.8 бағдарламасында (контигтің ең аз ұзындығы 300 н.ж., ең аз жабындылық 5×) Pilon екі рет жылтыратумен (Bowtie2 v2.4.4 картирлеуі, SAMtools v1.20 өңдеуі) орындалды. Жинақ көрсеткіштері QUAST v5.2.0 бағдарламасында бағаланып, аннотация RASTtk арқылы жүргізілді; аннотация кезінде плазмидалық репликондардың болуы да бағаланды.
Molecular Typing and Phylogenetic AnalysisМолекулярное типирование и филогенетический анализМолекулалық типтеу және филогенетикалық талдау
Multilocus sequence typing (MLST) was performed with mlst v2.23.2 using the PubMLST S. aureus scheme (loci arcC, aroE, glpF, gmk, pta, tpi, and yqiL). A maximum-likelihood phylogenetic tree based on core-genome single-nucleotide polymorphisms (SNPs) of 47 isolates (5 clinical and 42 food) was constructed with CSI Phylogeny v1.4 using the following filters: minimum depth 10×, minimum relative depth 10%, SNP pruning distance 10 bp, minimum SNP quality (Phred) 30, minimum mapping quality 25, and Z-score threshold 1.96.Мультилокусное сиквенс-типирование (MLST) выполняли в mlst v2.23.2 по схеме PubMLST для S. aureus (локусы arcC, aroE, glpF, gmk, pta, tpi и yqiL). Филогенетическое дерево методом максимального правдоподобия на основе однонуклеотидных полиморфизмов (SNP) кор-генома 47 изолятов (5 клинических и 42 пищевых) строили в CSI Phylogeny v1.4 со следующими фильтрами: минимальная глубина 10×, минимальная относительная глубина 10%, дистанция прунинга SNP 10 п.н., минимальное качество SNP (Phred) 30, минимальное качество картирования 25 и порог Z-оценки 1,96.Мультилокустық секвенс-типтеу (MLST) mlst v2.23.2 бағдарламасында PubMLST S. aureus схемасы бойынша (arcC, aroE, glpF, gmk, pta, tpi және yqiL локустары) орындалды. 47 изоляттың (5 клиникалық және 42 тағамдық) кор-геномының бір нуклеотидті полиморфизмдері (SNP) негізіндегі ең жоғары ықтималдық әдісімен филогенетикалық ағаш CSI Phylogeny v1.4 бағдарламасында мынадай сүзгілермен құрылды: ең аз тереңдік 10×, ең аз салыстырмалы тереңдік 10%, SNP прунинг қашықтығы 10 н.ж., SNP-тің ең аз сапасы (Phred) 30, картирлеудің ең аз сапасы 25 және Z-бағаның шекті мәні 1,96.
Analysis of Resistance and Virulence GenesАнализ генов резистентности и вирулентностиТөзімділік және вируленттілік гендерін талдау
Antimicrobial resistance genes were identified in the assemblies using ResFinder and the Comprehensive Antibiotic Resistance Database (CARD) with default parameters. Virulence factors — genes encoding enterotoxins and enterotoxin-like proteins, superantigens, hemolysins, leukocidins, adhesins, and immune evasion factors — were identified using the Virulence Factor Database (VFDB).Гены антимикробной резистентности выявляли в сборках с помощью ResFinder и Comprehensive Antibiotic Resistance Database (CARD) с параметрами по умолчанию. Факторы вирулентности — гены энтеротоксинов и энтеротоксиноподобных белков, суперантигенов, гемолизинов, лейкоцидинов, адгезинов и факторов ускользания от иммунитета — определяли с использованием Virulence Factor Database (VFDB).Микробқа қарсы төзімділік гендері жинақтарда ResFinder және Comprehensive Antibiotic Resistance Database (CARD) көмегімен әдепкі параметрлермен анықталды. Вируленттілік факторлары — энтеротоксиндер мен энтеротоксинтәрізді ақуыздар, суперантигендер, гемолизиндер, лейкоцидиндер, адгезиндер және иммундық жүйеден жалтару факторларының гендері — Virulence Factor Database (VFDB) арқылы анықталды.
Data Analysis and PresentationАнализ и представление данныхДеректерді талдау және ұсыну
This was a descriptive study; owing to the small sample size (n = 5), no statistical hypothesis testing was performed, and results are presented as absolute frequencies (number of isolates out of five). The gene presence/absence matrix for Fig 1 was compiled from ResFinder, CARD, and VFDB outputs and phenotypic susceptibility data, and visualized in Python v3.13 with matplotlib v3.11.2.Исследование носило описательный характер; из-за малого объёма выборки (n = 5) статистическая проверка гипотез не проводилась, результаты представлены в виде абсолютных частот (число изолятов из пяти). Матрицу присутствия/отсутствия генов для рис. 1 составляли по результатам ResFinder, CARD и VFDB и данным фенотипической чувствительности, визуализацию выполняли в Python v3.13 с библиотекой matplotlib v3.11.2.Зерттеу сипаттамалық сипатта болды; таңдаманың шағындығына байланысты (n = 5) гипотезаларды статистикалық тексеру жүргізілмеді, нәтижелер абсолюттік жиіліктер түрінде (бестен изоляттар саны) берілген. 1-сурет үшін гендердің бар/жоқ матрицасы ResFinder, CARD және VFDB нәтижелері мен фенотиптік сезімталдық деректері бойынша құрастырылып, визуализация Python v3.13 ортасында matplotlib v3.11.2 кітапханасымен орындалды.
Ethics StatementЭтическое заявлениеЭтикалық мәлімдеме
This study used isolates from the collections of the Departments of Sanitary and Epidemiological Control obtained during routine activities of the sanitary and epidemiological surveillance authorities. No personal patient data were provided to the investigators. Under the legislation of the Republic of Kazakhstan, ethics committee review was not required.В исследовании использованы изоляты из коллекций департаментов санитарно-эпидемиологического контроля, полученные в ходе рутинной деятельности органов санитарно-эпидемиологического надзора. Персональные данные пациентов исследователям не передавались. Согласно законодательству Республики Казахстан, рассмотрение этическим комитетом не требовалось.Зерттеуде санитариялық-эпидемиологиялық қадағалау органдарының күнделікті қызметі барысында алынған санитариялық-эпидемиологиялық бақылау департаменттерінің коллекцияларындағы изоляттар пайдаланылды. Науқастардың жеке деректері зерттеушілерге берілмеді. Қазақстан Республикасының заңнамасына сәйкес этикалық комитеттің қарауы талап етілмеді.
ResultsРезультатыНәтижелер
General Characteristics of the Clinical IsolatesОбщая характеристика клинических изолятовКлиникалық изоляттардың жалпы сипаттамасы
All five isolates were Gram-positive cocci; species identity was confirmed by MALDI-TOF MS (log(score) ≥ 2.0) and 16S rRNA gene sequencing. All five isolates exhibited β-hemolysis on blood agar. Assembled genome sizes ranged from 2,733,046 to 2,842,486 bp, and mean coverage ranged from 117× to 183× (Table 1; S1 Table). No plasmid replicons were detected during annotation.Все пять изолятов представляли собой грамположительные кокки; видовая принадлежность подтверждена MALDI-TOF MS (log(score) ≥ 2,0) и секвенированием гена 16S рРНК. Все пять изолятов проявляли β-гемолиз на кровяном агаре. Размеры собранных геномов составили от 2 733 046 до 2 842 486 п.н., среднее покрытие — от 117× до 183× (табл. 1; S1 Table). Плазмидных репликонов при аннотации не выявлено.Барлық бес изолят грамоң кокктар болды; түрлік тиесілілік MALDI-TOF MS (log(score) ≥ 2,0) және 16S рРНҚ генін секвенирлеу арқылы расталды. Бес изоляттың бәрі қанды агарда β-гемолиз көрсетті. Жиналған геномдардың өлшемі 2 733 046-дан 2 842 486 н.ж. дейін, орташа жабындылық 117×-ден 183×-ге дейін болды (1-кесте; S1 Table). Аннотация кезінде плазмидалық репликондар анықталмады.
MLST assigned the isolates to four STs: ST22 (K1 and K4), ST5 (K2), ST45 (K3), and ST15 (K5). Both ST22 isolates were MRSA, whereas the remaining three were methicillin-susceptible S. aureus (MSSA).MLST отнесло изоляты к четырём ST: ST22 (K1 и K4), ST5 (K2), ST45 (K3) и ST15 (K5). Оба изолята ST22 были MRSA, остальные три — метициллиночувствительными S. aureus (MSSA).MLST изоляттарды төрт ST-ке жатқызды: ST22 (K1 және K4), ST5 (K2), ST45 (K3) және ST15 (K5). Екі ST22 изоляты да MRSA болды, қалған үшеуі метициллинге сезімтал S. aureus (MSSA).
Table 1. Characteristics of clinical S. aureus isolates from children with food poisoning
Таблица 1. Характеристика клинических изолятов S. aureus от детей с пищевым отравлением
1-кесте. Тамақтан уланған балалардан бөлінген клиникалық S. aureus изоляттарының сипаттамасы
| IsolateИзолятИзолят | Genome size, bpРазмер генома, п.н.Геном өлшемі, н.ж. | Coverage, ×Покрытие, ×Жабындылық, × | ST4ST4ST4 | HemolysisГемолизГемолиз | Resistance (phenotype)1Устойчивость (фенотип)1Төзімділік (фенотип)1 | Category2Категория2Санат2 | MAR3MAR3MAR3 |
|---|---|---|---|---|---|---|---|
| K1 | 2 842 486 | 125 | ST22 | β | PEN, FOX, LZD | MDR, MRSA | 0.25 |
| K2 | 2 740 426 | 183 | ST5 | β | PEN | R, MSSA | 0.08 |
| K3 | 2 733 046 | 149 | ST45 | β | — | S, MSSA | 0 |
| K4 | 2 754 519 | 117 | ST22 | β | PEN, FOX | MDR, MRSA | 0.17 |
| K5 | 2 754 942 | 121 | ST15 | β | PEN | R, MSSA | 0.08 |
1 PEN = penicillin; FOX = cefoxitin; LZD = linezolid. All isolates remained susceptible to all other agents among the 12 tested.
2 MDR = multidrug-resistant; R = resistant; S = susceptible to all agents tested; MRSA/MSSA = methicillin-resistant/methicillin-susceptible S. aureus.
3 MAR = multiple antibiotic resistance index.
4 ST = sequence type. GenBank accession numbers are provided in the Data Availability Statement.
1 PEN — пенициллин; FOX — цефокситин; LZD — линезолид. Все изоляты остались чувствительными ко всем остальным препаратам из 12 тестированных.
2 MDR — полирезистентный; R — устойчивый; S — чувствительный ко всем тестированным препаратам; MRSA/MSSA — метициллинорезистентный/метициллиночувствительный S. aureus.
3 MAR — индекс множественной антибиотикорезистентности.
4 ST — сиквенс-тип. Номера доступа GenBank приведены в разделе о доступности данных.
1 PEN — пенициллин; FOX — цефокситин; LZD — линезолид. Барлық изоляттар тексерілген 12 препараттың қалғандарының бәріне сезімтал болып қалды.
2 MDR — көпдәрілік төзімді; R — төзімді; S — тексерілген барлық препаратқа сезімтал; MRSA/MSSA — метициллинге төзімді/метициллинге сезімтал S. aureus.
3 MAR — көптік антибиотикке төзімділік индексі.
4 ST — секвенс-тип. GenBank қолжетімділік нөмірлері деректердің қолжетімділігі бөлімінде келтірілген.
Phenotypic Antimicrobial ResistanceФенотипическая антимикробная резистентностьФенотиптік микробқа қарсы төзімділік
Resistance to penicillin was detected in 4/5 isolates (80%; K1, K2, K4, K5), to cefoxitin in 2/5 (40%; K1, K4), and to linezolid in 1/5 (20%; K1) (Fig 1A). Isolate K3 (ST45) was susceptible to all agents tested. All isolates remained susceptible to erythromycin, clindamycin, tetracycline, chloramphenicol, ciprofloxacin, trimethoprim/sulfamethoxazole, gentamicin, vancomycin, and nitrofurantoin.Устойчивость к пенициллину выявлена у 4/5 изолятов (80%; K1, K2, K4, K5), к цефокситину — у 2/5 (40%; K1, K4), к линезолиду — у 1/5 (20%; K1) (рис. 1A). Изолят K3 (ST45) был чувствителен ко всем тестированным препаратам. Все изоляты сохранили чувствительность к эритромицину, клиндамицину, тетрациклину, хлорамфениколу, ципрофлоксацину, триметоприму/сульфаметоксазолу, гентамицину, ванкомицину и нитрофурантоину.Пенициллинге төзімділік 4/5 изолятта (80%; K1, K2, K4, K5), цефокситинге — 2/5 (40%; K1, K4), линезолидке — 1/5 (20%; K1) анықталды (1A-сурет). K3 (ST45) изоляты тексерілген барлық препаратқа сезімтал болды. Барлық изоляттар эритромицинге, клиндамицинге, тетрациклинге, хлорамфениколға, ципрофлоксацинге, триметоприм/сульфаметоксазолға, гентамицинге, ванкомицинге және нитрофурантоинге сезімталдығын сақтады.
Isolate K1 (ST22, MRSA) was resistant to agents from three categories — penicillins, anti-staphylococcal β-lactams, and oxazolidinones — and was classified as MDR (MAR index 0.25). Isolate K4 (ST22, MRSA), resistant to penicillin and cefoxitin (MAR index 0.17), was also classified as MDR because, under the criteria described in the Antimicrobial Susceptibility Testing section, any MRSA isolate is considered multidrug-resistant [10]. The proportion of MDR isolates among the clinical isolates was 40% (2/5). The MAR index was 0.08 for isolates K2 and K5 and 0 for isolate K3 (Table 1).Изолят K1 (ST22, MRSA) был устойчив к препаратам трёх категорий — пенициллинам, антистафилококковым β-лактамам и оксазолидинонам — и классифицирован как MDR (индекс MAR 0,25). Изолят K4 (ST22, MRSA), устойчивый к пенициллину и цефокситину (индекс MAR 0,17), также отнесён к MDR, поскольку по критериям, описанным в разделе об определении антимикробной чувствительности, любой изолят MRSA считается полирезистентным [10]. Доля MDR-изолятов среди клинических составила 40% (2/5). Индекс MAR равнялся 0,08 для изолятов K2 и K5 и 0 для изолята K3 (табл. 1).K1 (ST22, MRSA) изоляты үш санаттағы препараттарға — пенициллиндерге, антистафилококктық β-лактамдарға және оксазолидинондарға — төзімді болып, MDR деп жіктелді (MAR индексі 0,25). Пенициллин мен цефокситинге төзімді K4 (ST22, MRSA) изоляты (MAR индексі 0,17) да MDR қатарына жатқызылды, себебі микробқа қарсы сезімталдықты анықтау бөлімінде сипатталған критерийлер бойынша кез келген MRSA изоляты көпдәрілік төзімді деп саналады [10]. Клиникалық изоляттар арасындағы MDR үлесі 40% (2/5) құрады. MAR индексі K2 және K5 изоляттары үшін 0,08, K3 изоляты үшін 0 болды (1-кесте).
Antimicrobial Resistance GenesГены антимикробной резистентностиМикробқа қарсы төзімділік гендері
ResFinder detected the β-lactamase gene blaZ in 4/5 isolates (80%; K1, K2, K4, K5), and its presence fully matched phenotypic penicillin resistance. The mecA gene was detected in both ST22 isolates (40%), likewise in complete agreement with cefoxitin resistance. Both ST22 isolates also carried the lincosamide nucleotidyltransferase gene lnu(A), although they remained susceptible to clindamycin. No acquired genes accounting for linezolid resistance in isolate K1 (cfr, optrA, poxtA) were identified.ResFinder выявил ген β-лактамазы blaZ у 4/5 изолятов (80%; K1, K2, K4, K5), и его наличие полностью совпало с фенотипической устойчивостью к пенициллину. Ген mecA обнаружен у обоих изолятов ST22 (40%), также в полном соответствии с устойчивостью к цефокситину. Оба изолята ST22 несли и ген линкозамид-нуклеотидилтрансферазы lnu(A), оставаясь при этом чувствительными к клиндамицину. Приобретённых генов, объясняющих устойчивость к линезолиду у изолята K1 (cfr, optrA, poxtA), не выявлено.ResFinder β-лактамаза гені blaZ-ты 4/5 изолятта (80%; K1, K2, K4, K5) анықтады, оның болуы пенициллинге фенотиптік төзімділікпен толық сәйкес келді. mecA гені екі ST22 изолятында да (40%) табылды, бұл да цефокситинге төзімділікпен толық үйлесті. Екі ST22 изоляты линкозамид-нуклеотидилтрансфераза гені lnu(A)-ны да алып жүрді, алайда клиндамицинге сезімтал болып қалды. K1 изолятындағы линезолидке төзімділікті түсіндіретін жүре пайда болған гендер (cfr, optrA, poxtA) анықталмады.
CARD analysis revealed the global regulator and efflux system genes mgrA, arlR, and mepR in all five isolates (100%), and arlS in 4/5 isolates (80%). The efflux pump genes norA (K2, K5) and sdrM (K5) and the fosfomycin thiol transferase gene fosB (K2) showed a lineage-specific distribution. With CARD, blaZ was identified only in isolate K2 (Fig 1A).Анализ в CARD выявил гены глобальных регуляторов и систем эффлюкса mgrA, arlR и mepR у всех пяти изолятов (100%), а arlS — у 4/5 изолятов (80%). Гены помп эффлюкса norA (K2, K5) и sdrM (K5), а также ген фосфомицин-тиолтрансферазы fosB (K2) имели линия-специфичное распределение. В CARD blaZ был идентифицирован только у изолята K2 (рис. 1A).CARD талдауы ғаламдық реттеуіштер мен эффлюкс жүйелерінің гендері mgrA, arlR және mepR-ді бес изоляттың бәрінде (100%), ал arlS-ті 4/5 изолятта (80%) анықтады. Эффлюкс помпаларының гендері norA (K2, K5) мен sdrM (K5), сондай-ақ фосфомицин-тиолтрансфераза гені fosB (K2) желіге тән таралым көрсетті. CARD-та blaZ тек K2 изолятында анықталды (1A-сурет).
Toxin, Adhesion, and Immune Evasion GenesГены токсинов, адгезии и ускользания от иммунитетаТоксин, адгезия және иммундық жүйеден жалтару гендері
The classical enterotoxin gene sea was detected only in isolate K2 (ST5). Genes of the egc cluster were found in 4/5 isolates: seg, selm, seln, and selo in K1–K4, and sei in K1 and K4. Thus, both ST22 (MRSA) isolates carried the egc gene set (seg-sei-selm-seln-selo). The selk gene was detected in K2 and K3, yent2 in K1–K4, and yent1 only in K2. Isolate K5 (ST15) carried no classical enterotoxin or enterotoxin-like genes (Fig 1B).Классический ген энтеротоксина sea выявлен только у изолята K2 (ST5). Гены кластера egc обнаружены у 4/5 изолятов: seg, selm, seln и selo — у K1–K4, sei — у K1 и K4. Таким образом, оба изолята ST22 (MRSA) несли набор генов egc (seg-sei-selm-seln-selo). Ген selk выявлен у K2 и K3, yent2 — у K1–K4, yent1 — только у K2. Изолят K5 (ST15) не нёс ни классических, ни энтеротоксиноподобных генов (рис. 1B).Классикалық энтеротоксин гені sea тек K2 (ST5) изолятында анықталды. egc кластерінің гендері 4/5 изолятта табылды: seg, selm, seln және selo — K1–K4-те, sei — K1 мен K4-те. Осылайша, екі ST22 (MRSA) изоляты да egc гендер жиынтығын (seg-sei-selm-seln-selo) алып жүрді. selk гені K2 мен K3-те, yent2 — K1–K4-те, yent1 тек K2-де анықталды. K5 (ST15) изоляты классикалық да, энтеротоксинтәрізді де гендерді алып жүрмеді (1B-сурет).
The tsst-1 gene was detected in both ST22 (MRSA) isolates, K1 and K4 (40%). The hemolysin genes hla, hld, and hlgA/B/C were present in all five isolates (100%). Among leukocidin genes, only lukD was detected (K2, K5); lukE and lukM were absent. The number of staphylococcal superantigen-like protein genes (set/ssl) ranged from 7 to 11 per genome (Fig 1B).Ген tsst-1 выявлен у обоих изолятов ST22 (MRSA), K1 и K4 (40%). Гены гемолизинов hla, hld и hlgA/B/C присутствовали у всех пяти изолятов (100%). Среди генов лейкоцидинов обнаружен только lukD (K2, K5); lukE и lukM отсутствовали. Число генов стафилококковых суперантиген-подобных белков (set/ssl) составляло от 7 до 11 на геном (рис. 1B).tsst-1 гені екі ST22 (MRSA) изолятында — K1 мен K4-те (40%) анықталды. Гемолизин гендері hla, hld және hlgA/B/C бес изоляттың бәрінде (100%) болды. Лейкоцидин гендерінің ішінен тек lukD табылды (K2, K5); lukE мен lukM болмады. Стафилококктық суперантигентәрізді ақуыз гендерінің (set/ssl) саны геномға шаққанда 7-ден 11-ге дейін болды (1B-сурет).
The adhesin genes atl, ebp, fnbA, icaA, icaC, and spa were detected in all isolates, and icaB, icaR, sdrC, sdrD, sdrE, and efb in 4/5. Variable genes included fnbB (K2, K3, K5), cna (K1, K3, K4), ebh (K2, K5), eap/map (K3, K4), and clfA (K2 only). The immune evasion genes chp, scn, and sbi and the capsular operon were present in all isolates, and adsA in all except K2 (Fig 1C).Гены адгезинов atl, ebp, fnbA, icaA, icaC и spa выявлены у всех изолятов, а icaB, icaR, sdrC, sdrD, sdrE и efb — у 4/5. К вариабельным относились fnbB (K2, K3, K5), cna (K1, K3, K4), ebh (K2, K5), eap/map (K3, K4) и clfA (только K2). Гены ускользания от иммунитета chp, scn и sbi, а также капсульный оперон присутствовали у всех изолятов, adsA — у всех, кроме K2 (рис. 1C).Адгезин гендері atl, ebp, fnbA, icaA, icaC және spa барлық изоляттарда, ал icaB, icaR, sdrC, sdrD, sdrE және efb — 4/5-те анықталды. Құбылмалы гендерге fnbB (K2, K3, K5), cna (K1, K3, K4), ebh (K2, K5), eap/map (K3, K4) және clfA (тек K2) жатты. Иммундық жүйеден жалтару гендері chp, scn және sbi, сондай-ақ капсулалық оперон барлық изоляттарда болды, adsA — K2-ден басқасының бәрінде (1C-сурет).
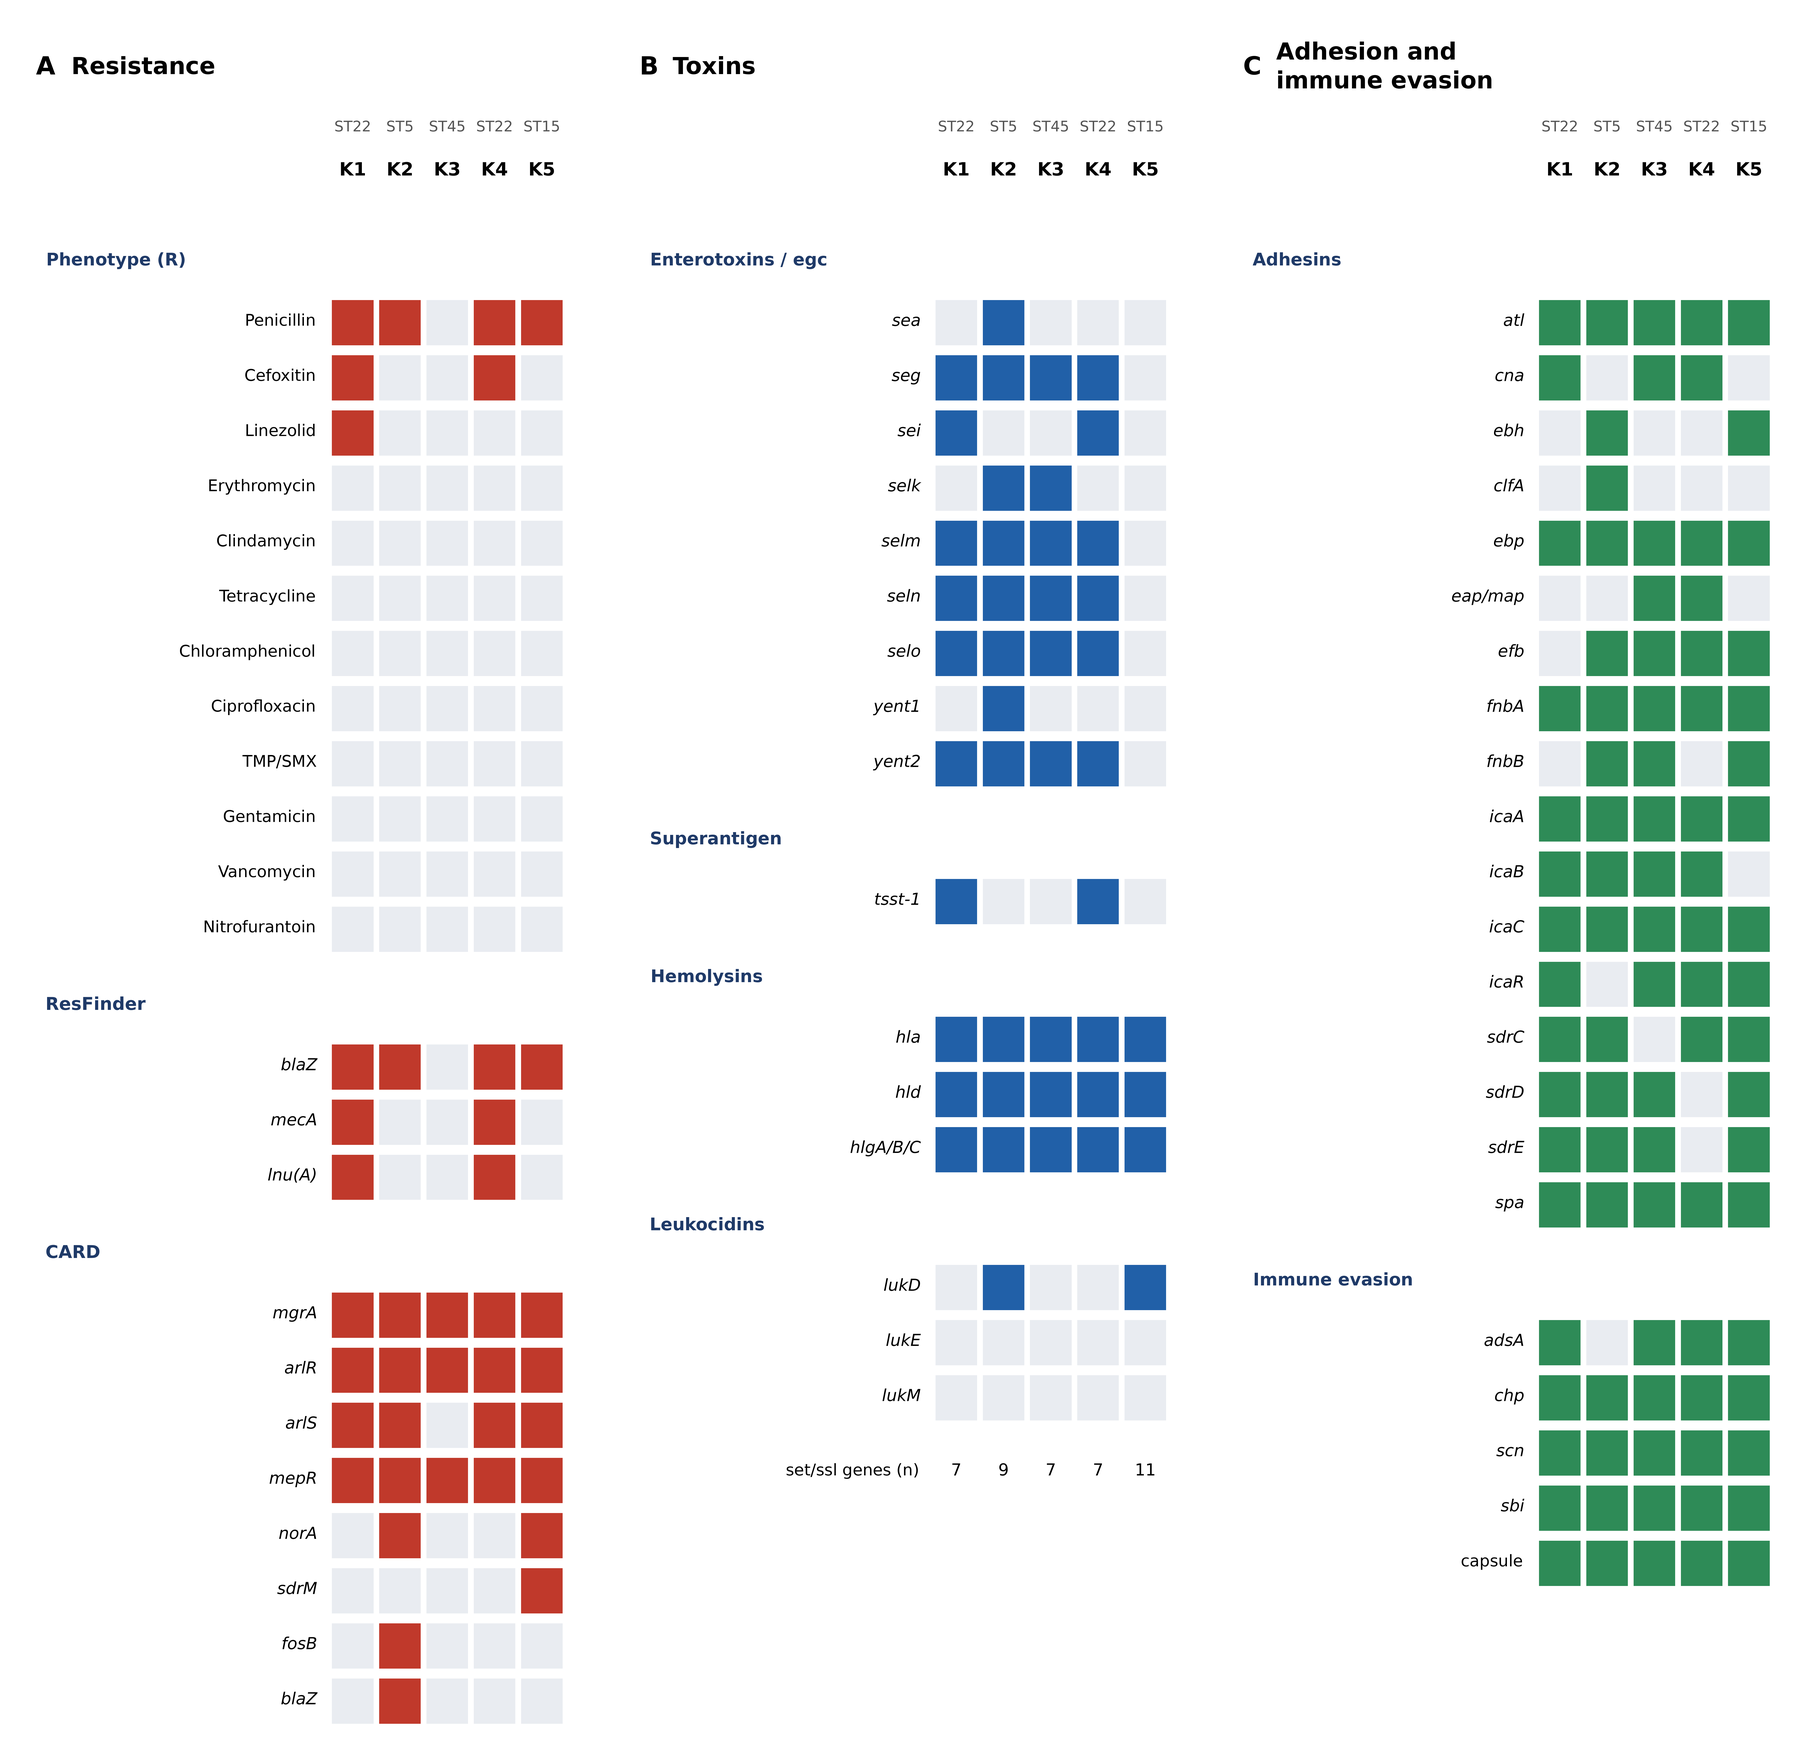
Fig 1. Phenotypic resistance and genetic profiles of five clinical S. aureus isolates (K1–K5) from children with food poisoning. (A) Phenotypic resistance to 12 antimicrobial agents, acquired resistance genes (ResFinder), and chromosomal resistance-associated determinants (CARD). (B) Genes encoding enterotoxins and the egc cluster, the superantigen TSST-1, hemolysins, and leukocidins; the bottom row shows the number of staphylococcal superantigen-like protein genes (set/ssl) per genome. (C) Adhesion and immune evasion genes. Filled cells indicate gene presence or phenotypic resistance; light cells indicate absence. The sequence type is shown above each isolate. No statistical comparisons were performed for these data; complete profiles of individual isolates are shown (n = 5). TMP/SMX, trimethoprim/sulfamethoxazole.
Рис. 1. Фенотипическая устойчивость и генетические профили пяти клинических изолятов S. aureus (K1–K5) от детей с пищевым отравлением. (A) Фенотипическая устойчивость к 12 антимикробным препаратам, приобретённые гены резистентности (ResFinder) и хромосомные детерминанты, связанные с резистентностью (CARD). (B) Гены энтеротоксинов и кластера egc, суперантигена TSST-1, гемолизинов и лейкоцидинов; в нижней строке — число генов стафилококковых суперантиген-подобных белков (set/ssl) на геном. (C) Гены адгезии и ускользания от иммунитета. Заполненные ячейки означают наличие гена или фенотипическую устойчивость, светлые — отсутствие. Над каждым изолятом указан сиквенс-тип. Статистические сравнения для этих данных не проводились; показаны полные профили отдельных изолятов (n = 5). TMP/SMX — триметоприм/сульфаметоксазол.
1-сурет. Тамақтан уланған балалардан бөлінген бес клиникалық S. aureus изолятының (K1–K5) фенотиптік төзімділігі мен генетикалық профильдері. (A) 12 микробқа қарсы препаратқа фенотиптік төзімділік, жүре пайда болған төзімділік гендері (ResFinder) және төзімділікке байланысты хромосомалық детерминанттар (CARD). (B) Энтеротоксиндер мен egc кластерінің, TSST-1 суперантигенінің, гемолизиндер мен лейкоцидиндердің гендері; төменгі жолда геномға шаққандағы стафилококктық суперантигентәрізді ақуыз гендерінің (set/ssl) саны. (C) Адгезия және иммундық жүйеден жалтару гендері. Толтырылған ұяшықтар геннің болуын немесе фенотиптік төзімділікті, ашық ұяшықтар жоқтығын білдіреді. Әр изоляттың үстінде секвенс-тип көрсетілген. Бұл деректер бойынша статистикалық салыстырулар жүргізілмеді; жекелеген изоляттардың толық профильдері берілген (n = 5). TMP/SMX — триметоприм/сульфаметоксазол.
Phylogenetic Relatedness of Clinical and Food IsolatesФилогенетическое родство клинических и пищевых изолятовКлиникалық және тағамдық изоляттардың филогенетикалық туыстығы
In the phylogenetic tree based on core-genome SNPs of 47 isolates, each clinical isolate was positioned within a cluster of food isolates of the same ST with minimal branch lengths (Fig 2; Table 2).На филогенетическом дереве, построенном по SNP кор-генома 47 изолятов, каждый клинический изолят располагался внутри кластера пищевых изолятов того же ST с минимальными длинами ветвей (рис. 2; табл. 2).47 изоляттың кор-геномдық SNP негізінде құрылған филогенетикалық ағашта әрбір клиникалық изолят сол ST-ке жататын тағамдық изоляттар кластерінің ішінде ең қысқа бұтақ ұзындықтарымен орналасты (2-сурет; 2-кесте).
Isolates K1 and K4 (ST22, MRSA) clustered with eight food isolates from Astana recovered from raw milk, chicken meat, chicken pâté, ready-to-eat dishes (Olivier salad, Alfredo pasta, and choux pastries), canned tuna, and beef dumplings (pelmeni). All isolates in this cluster carried the blaZ-mecA-lnu(A) gene combination and were resistant to penicillin and cefoxitin; in six of the eight food isolates, the toxin gene profile (seg, sei, selm, seln, selo, yent2, tsst-1) was identical to that of the clinical isolates.Изоляты K1 и K4 (ST22, MRSA) кластеризовались с восемью пищевыми изолятами из Астаны, выделенными из сырого молока, куриного мяса, куриного паштета, готовых блюд (салат оливье, паста альфредо и заварные пирожные), консервированного тунца и пельменей из говядины. Все изоляты этого кластера несли комбинацию генов blaZ-mecA-lnu(A) и были устойчивы к пенициллину и цефокситину; у шести из восьми пищевых изолятов профиль генов токсинов (seg, sei, selm, seln, selo, yent2, tsst-1) был идентичен таковому у клинических изолятов.K1 және K4 (ST22, MRSA) изоляттары шикі сүттен, тауық етінен, тауық паштетінен, дайын тағамдардан (оливье салаты, альфредо пастасы және заварной тоқаштар), консервіленген тунецтен және сиыр етінен жасалған пельменнен бөлінген Астанадан алынған сегіз тағамдық изолятпен кластерленді. Осы кластердің барлық изоляттары blaZ-mecA-lnu(A) гендер үйлесімін алып жүрді әрі пенициллин мен цефокситинге төзімді болды; сегіз тағамдық изоляттың алтауында токсин гендерінің профилі (seg, sei, selm, seln, selo, yent2, tsst-1) клиникалық изоляттардікімен бірдей болды.
Isolate K2 (ST5) grouped with four ST5 food isolates from chicken meat and sour cream (Kostanay region) and beef (Astana). It shared with the beef isolate the sea gene and the seg, selk, selm, seln, selo, yent1, and lukD genes; unlike three of the ST5 food isolates, K2 lacked tsst-1 but carried blaZ. Isolate K3 (ST45) was nearly identical to an isolate from dumplings (Kostanay region) and fully matched it in toxin genes and CARD regulators, differing only in the absence of blaZ and in penicillin susceptibility. Isolate K5 (ST15) paired with an isolate from chicken fillet (Astana) with an identical set of virulence genes and CARD determinants; unlike the clinical isolate, the food isolate additionally carried erm(C) and was multidrug-resistant.Изолят K2 (ST5) группировался с четырьмя пищевыми изолятами ST5 из куриного мяса и сметаны (Костанайская область) и говядины (Астана). С изолятом из говядины он разделял ген sea, а также гены seg, selk, selm, seln, selo, yent1 и lukD; в отличие от трёх пищевых изолятов ST5, K2 не имел tsst-1, но нёс blaZ. Изолят K3 (ST45) был практически идентичен изоляту из пельменей (Костанайская область) и полностью совпадал с ним по генам токсинов и регуляторам CARD, отличаясь лишь отсутствием blaZ и чувствительностью к пенициллину. Изолят K5 (ST15) составил пару с изолятом из куриного филе (Астана) с идентичным набором генов вирулентности и детерминант CARD; в отличие от клинического, пищевой изолят дополнительно нёс erm(C) и был полирезистентным.K2 (ST5) изоляты тауық еті мен қаймақтан (Қостанай облысы) және сиыр етінен (Астана) бөлінген төрт ST5 тағамдық изолятымен топтасты. Сиыр етінен бөлінген изолятпен ол sea генін, сондай-ақ seg, selk, selm, seln, selo, yent1 және lukD гендерін бөлісті; үш ST5 тағамдық изолятынан айырмашылығы, K2-де tsst-1 болмады, бірақ blaZ бар еді. K3 (ST45) изоляты пельменнен бөлінген изолятқа (Қостанай облысы) барынша ұқсас болып, токсин гендері мен CARD реттеуіштері бойынша онымен толық сәйкес келді, тек blaZ жоқтығымен және пенициллинге сезімталдығымен ерекшеленді. K5 (ST15) изоляты тауық филесінен бөлінген изолятпен (Астана) вируленттілік гендері мен CARD детерминанттарының бірдей жиынтығымен жұп құрады; клиникалықтан айырмашылығы, тағамдық изолят қосымша erm(C) алып жүрді әрі көпдәрілік төзімді болды.
Table 2. Food-derived S. aureus isolates phylogenetically closest to the clinical isolates
Таблица 2. Пищевые изоляты S. aureus, филогенетически наиболее близкие к клиническим
2-кесте. Клиникалық изоляттарға филогенетикалық жағынан ең жақын тағамдық S. aureus изоляттары
| Clinical isolate (ST)1Клинический изолят (ST)1Клиникалық изолят (ST)1 | Food isolates in the cluster: source, regionПищевые изоляты кластера: источник, регионКластердегі тағамдық изоляттар: көз, өңір | Shared determinantsОбщие детерминантыОртақ детерминанттар | DifferencesРазличияАйырмашылықтар | Ref.Ист.Дер. |
|---|---|---|---|---|
| K1, K4 (ST22, MRSA)K1, K4 (ST22, MRSA)K1, K4 (ST22, MRSA) | Sa8, raw milk; 118, chicken meat; 119, chicken pâté; 120, Olivier salad; 126, choux pastries; 127, canned tuna; 142, Alfredo pasta; 570, beef dumplings (all from Astana)Sa8, сырое молоко; 118, куриное мясо; 119, куриный паштет; 120, салат оливье; 126, заварные пирожные; 127, консервированный тунец; 142, паста альфредо; 570, пельмени из говядины (все из Астаны)Sa8, шикі сүт; 118, тауық еті; 119, тауық паштеті; 120, оливье салаты; 126, заварной тоқаштар; 127, консервіленген тунец; 142, альфредо пастасы; 570, сиыр етінен пельмень (барлығы Астанадан) | PEN-R, FOX-R; blaZ, mecA, lnu(A); seg, sei, selm, seln, selo, yent2, tsst-1 (in 6 of 8 food isolates)PEN-R, FOX-R; blaZ, mecA, lnu(A); seg, sei, selm, seln, selo, yent2, tsst-1 (у 6 из 8 пищевых изолятов)PEN-R, FOX-R; blaZ, mecA, lnu(A); seg, sei, selm, seln, selo, yent2, tsst-1 (8 тағамдық изоляттың 6-ында) | K1, additionally LZD-R; 120 lacks enterotoxin genes and tsst-1; 142 lacks tsst-1 and hldK1, дополнительно LZD-R; у 120 нет генов энтеротоксинов и tsst-1; у 142 нет tsst-1 и hldK1, қосымша LZD-R; 120-да энтеротоксин гендері мен tsst-1 жоқ; 142-де tsst-1 мен hld жоқ | [9][9][9] |
| K2 (ST5)K2 (ST5)K2 (ST5) | Sa7, chicken fillet; 149, sour cream; 2142, chicken meat (Kostanay region); 529, beef (Astana)Sa7, куриное филе; 149, сметана; 2142, куриное мясо (Костанайская область); 529, говядина (Астана)Sa7, тауық филесі; 149, қаймақ; 2142, тауық еті (Қостанай облысы); 529, сиыр еті (Астана) | fosB, norA, arlS; seg, selk, selm, seln, selo, yent1, lukD; sea shared with 529fosB, norA, arlS; seg, selk, selm, seln, selo, yent1, lukD; sea общий с 529fosB, norA, arlS; seg, selk, selm, seln, selo, yent1, lukD; sea 529-бен ортақ | K2: blaZ+, tsst-1−; Sa7, 529, 2142: tsst-1+; 149: MDR, erm(C)K2: blaZ+, tsst-1−; Sa7, 529, 2142: tsst-1+; 149: MDR, erm(C)K2: blaZ+, tsst-1−; Sa7, 529, 2142: tsst-1+; 149: MDR, erm(C) | [9][9][9] |
| K3 (ST45)K3 (ST45)K3 (ST45) | 325, dumplings (Kostanay region)325, пельмени (Костанайская область)325, пельмень (Қостанай облысы) | Identical toxin gene set (seg, selk, selm, seln, selo, yent2, 7 set genes) and CARD determinantsИдентичный набор генов токсинов (seg, selk, selm, seln, selo, yent2, 7 генов set) и детерминанты CARDТоксин гендерінің бірдей жиынтығы (seg, selk, selm, seln, selo, yent2, 7 set гені) және CARD детерминанттары | 325, blaZ+, PEN-R; K3, susceptible to all agents325, blaZ+, PEN-R; K3 чувствителен ко всем препаратам325, blaZ+, PEN-R; K3 барлық препаратқа сезімтал | [9][9][9] |
| K5 (ST15)K5 (ST15)K5 (ST15) | Sa2, chicken fillet (Astana)Sa2, куриное филе (Астана)Sa2, тауық филесі (Астана) | PEN-R; blaZ; norA, sdrM, arlS; lukD, 11 set genes; no enterotoxin genesPEN-R; blaZ; norA, sdrM, arlS; lukD, 11 генов set; генов энтеротоксинов нетPEN-R; blaZ; norA, sdrM, arlS; lukD, 11 set гені; энтеротоксин гендері жоқ | Sa2, erm(C), MDR (PEN, ERY, CLI); K5, PEN-R onlySa2, erm(C), MDR (PEN, ERY, CLI); K5 — только PEN-RSa2, erm(C), MDR (PEN, ERY, CLI); K5 — тек PEN-R | [9][9][9] |
1 PEN = penicillin; FOX = cefoxitin; LZD = linezolid; ERY = erythromycin; CLI = clindamycin; R = resistant; MDR = multidrug-resistant; MRSA = methicillin-resistant S. aureus; ST = sequence type.
1 PEN — пенициллин; FOX — цефокситин; LZD — линезолид; ERY — эритромицин; CLI — клиндамицин; R — устойчивый; MDR — полирезистентный; MRSA — метициллинорезистентный S. aureus; ST — сиквенс-тип.
1 PEN — пенициллин; FOX — цефокситин; LZD — линезолид; ERY — эритромицин; CLI — клиндамицин; R — төзімді; MDR — көпдәрілік төзімді; MRSA — метициллинге төзімді S. aureus; ST — секвенс-тип.
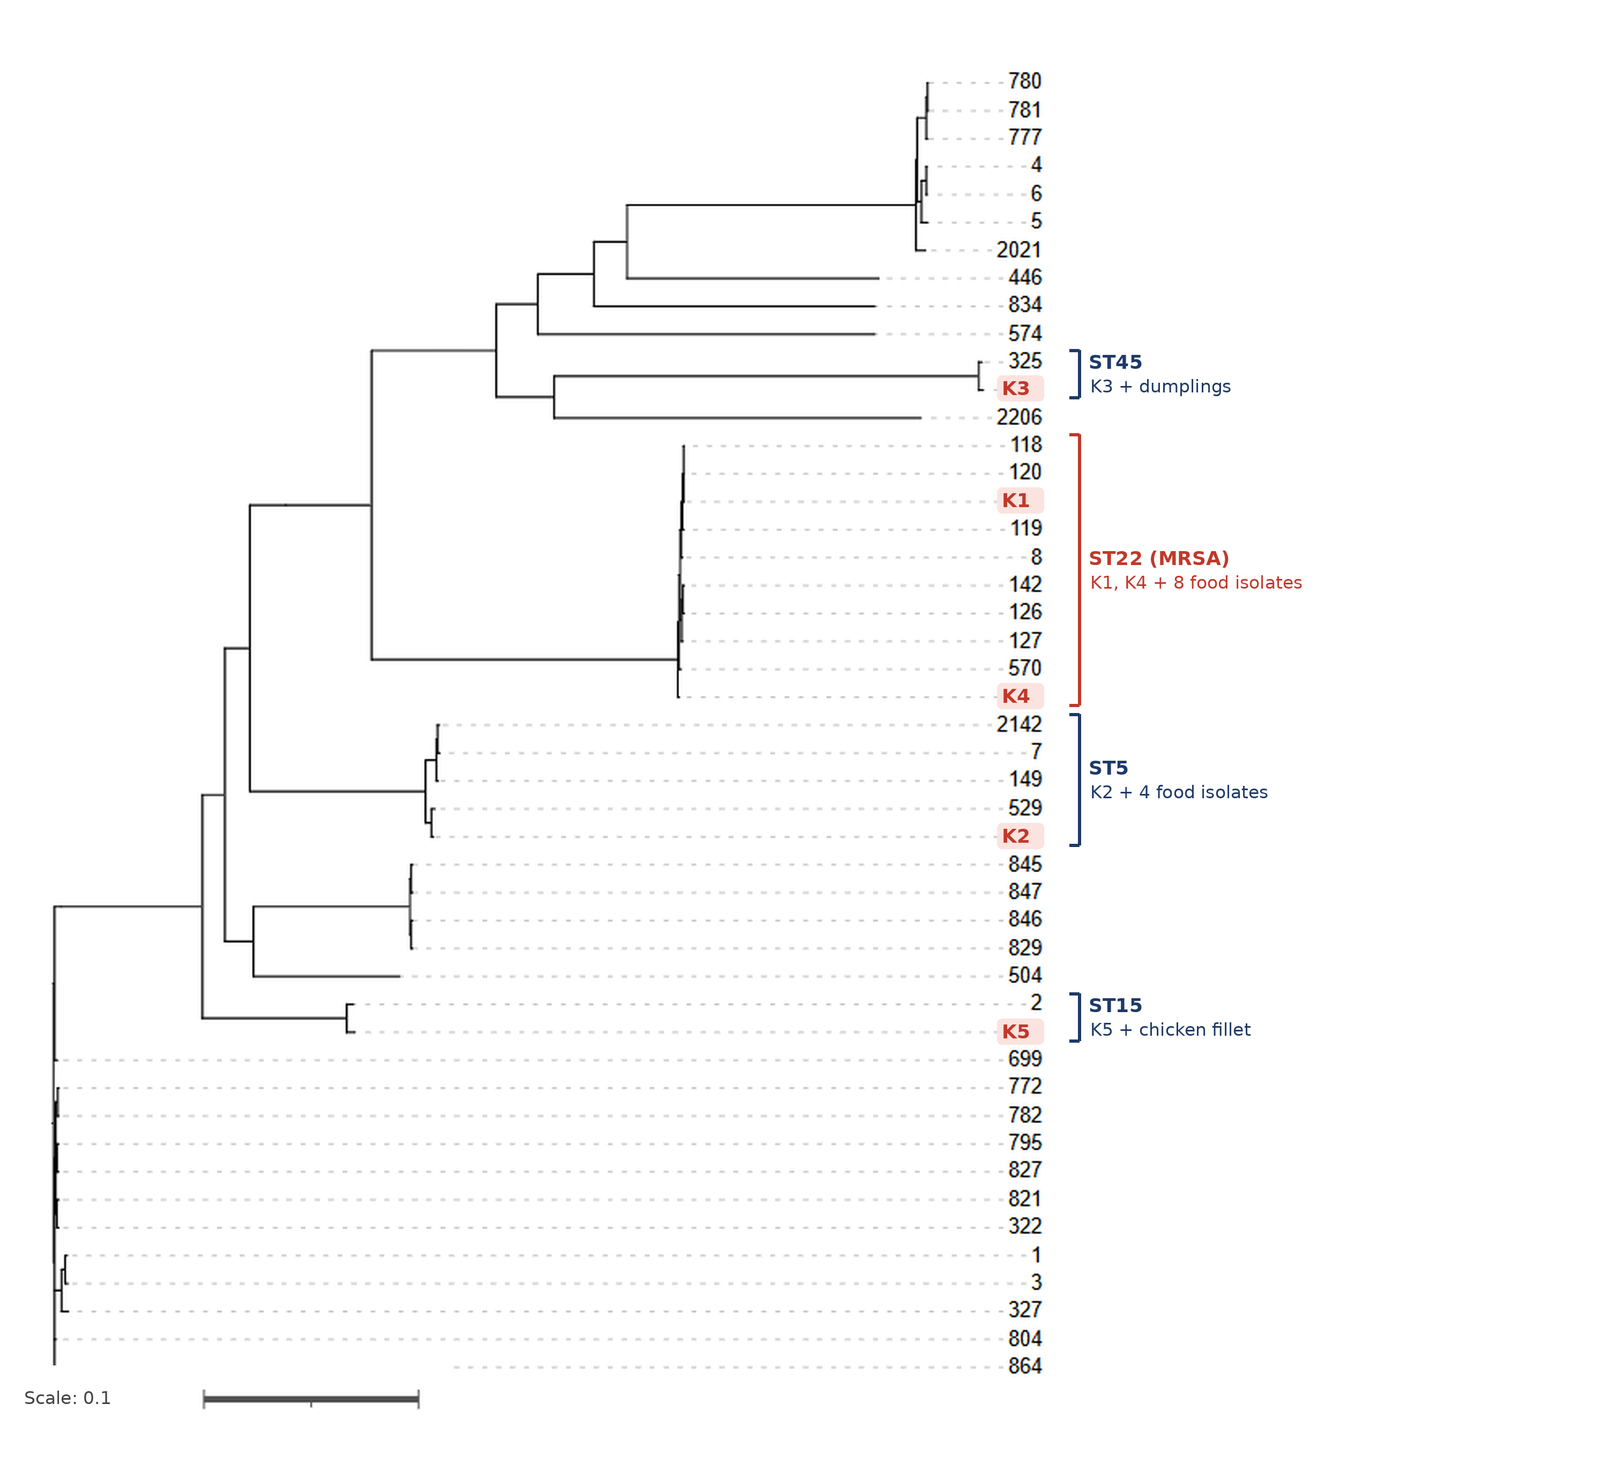
Fig 2. Maximum-likelihood phylogenetic tree of 47 S. aureus isolates (5 clinical and 42 food-derived) based on core-genome single-nucleotide polymorphisms (CSI Phylogeny v1.4). Clinical isolates (K1–K5) are shown in red; numerical labels denote food isolates [9]. Brackets mark clusters containing clinical isolates, with the sequence type indicated. Scale bar, nucleotide substitutions per site.
Рис. 2. Филогенетическое дерево методом максимального правдоподобия для 47 изолятов S. aureus (5 клинических и 42 пищевых) на основе однонуклеотидных полиморфизмов кор-генома (CSI Phylogeny v1.4). Клинические изоляты (K1–K5) показаны красным; числовые обозначения соответствуют пищевым изолятам [9]. Скобками отмечены кластеры, содержащие клинические изоляты, с указанием сиквенс-типа. Масштабная линейка — число нуклеотидных замен на сайт.
2-сурет. 47 S. aureus изолятының (5 клиникалық және 42 тағамдық) кор-геномдық бір нуклеотидті полиморфизмдері негізіндегі ең жоғары ықтималдық әдісімен құрылған филогенетикалық ағаш (CSI Phylogeny v1.4). Клиникалық изоляттар (K1–K5) қызыл түспен көрсетілген; сандық белгілер тағамдық изоляттарға сәйкес келеді [9]. Жақшалар клиникалық изоляттары бар кластерлерді белгілейді, секвенс-тип көрсетілген. Масштаб сызығы — сайтқа шаққандағы нуклеотид алмасулары саны.
DiscussionОбсуждениеТалқылау
This study provides the first whole-genome characterization of S. aureus isolates from children with food poisoning in Kazakhstan and compares them with food isolates from other regions of the country. Children are among the most vulnerable groups: SFP outbreaks in educational institutions affect dozens of people and are associated with breaches of sanitary and hygiene requirements in institutional catering [2,12].Настоящая работа представляет первую полногеномную характеристику изолятов S. aureus от детей с пищевым отравлением в Казахстане и сравнивает их с пищевыми изолятами из других регионов страны. Дети относятся к наиболее уязвимым группам: вспышки СПО в образовательных учреждениях затрагивают десятки человек и связаны с нарушениями санитарно-гигиенических требований при организованном питании [2,12].Бұл жұмыс Қазақстанда тамақтан уланған балалардан бөлінген S. aureus изоляттарының алғашқы толық геномдық сипаттамасын ұсынады әрі оларды елдің басқа өңірлеріндегі тағамдық изоляттармен салыстырады. Балалар ең осал топтардың қатарына жатады: білім беру мекемелеріндегі СТУ өршулері ондаған адамды қамтиды әрі ұйымдастырылған тамақтандырудағы санитариялық-гигиеналық талаптардың бұзылуымен байланысты [2,12].
The five clinical isolates belonged to four STs, suggesting that the cases were sporadic. Nevertheless, each clinical isolate clustered phylogenetically with food isolates of the same ST previously recovered from retail products [9]. Because the clinical isolates originated from the Pavlodar and Karaganda regions and the food isolates from Astana and the Kostanay region, the observed relatedness should be interpreted as evidence of widespread circulation of these lineages in the food chain of Kazakhstan rather than as direct identification of the source of infection. Identifying the primary source would require concurrent sampling of suspected foods and epidemiological data, with WGS providing a resolution unattainable by conventional typing methods [8].Пять клинических изолятов относились к четырём ST, что указывает на спорадический характер случаев. Тем не менее каждый клинический изолят филогенетически кластеризовался с пищевыми изолятами того же ST, ранее выделенными из розничных продуктов [9]. Поскольку клинические изоляты происходили из Павлодарской и Карагандинской областей, а пищевые — из Астаны и Костанайской области, наблюдаемое родство следует трактовать как свидетельство широкой циркуляции этих линий в пищевой цепи Казахстана, а не как прямое установление источника инфекции. Для определения первичного источника потребовались бы параллельный отбор подозрительных продуктов и эпидемиологические данные, при этом ПГС обеспечивает разрешение, недостижимое для традиционных методов типирования [8].Бес клиникалық изолят төрт ST-ке жатты, бұл жағдайлардың спорадикалық сипатын көрсетеді. Дегенмен әрбір клиникалық изолят бұрын бөлшек сауда өнімдерінен бөлінген сол ST-тегі тағамдық изоляттармен филогенетикалық кластерленді [9]. Клиникалық изоляттар Павлодар және Қарағанды облыстарынан, ал тағамдық изоляттар Астана мен Қостанай облысынан шыққандықтан, байқалған туыстықты инфекция көзін тікелей анықтау емес, осы желілердің Қазақстанның азық-түлік тізбегінде кеңінен айналымда болуының дәлелі ретінде түсіну керек. Бастапқы көзді анықтау үшін күдікті тағамдарды қатар іріктеу және эпидемиологиялық деректер қажет болар еді, бұл ретте ТГС дәстүрлі типтеу әдістеріне қолжетімсіз ажыратымдылық береді [8].
The most important epidemiological finding was the detection of two ST22 (MRSA) isolates that clustered with eight food isolates from raw milk, poultry meat, semi-processed meat products, and ready-to-eat dishes. The combination of methicillin resistance with tsst-1 and the egc cluster is characteristic of the hypervirulent ST22 MRSA lineage described in China [13]. TSST-1 producers belong predominantly to clonal complexes CC5 and CC22 [3], and the gene itself is increasingly detected in food isolates [14] and in isolates associated with food poisoning [5]. A similar association of tsst-1 with the ST22 MRSA clone has been reported for ready-to-eat food in Russia [15]. The frequency of tsst-1 among the clinical isolates (2/5) was higher than that reported in food collections from the wider region, for example, in raw beef in Mongolia (17.1%) [16] and in raw shrimp in China (3.2%) [17].Наиболее важной эпидемиологической находкой стало выявление двух изолятов ST22 (MRSA), кластеризовавшихся с восемью пищевыми изолятами из сырого молока, мяса птицы, мясных полуфабрикатов и готовых блюд. Сочетание метициллинорезистентности с tsst-1 и кластером egc характерно для гипервирулентной линии ST22 MRSA, описанной в Китае [13]. Продуценты TSST-1 относятся преимущественно к клональным комплексам CC5 и CC22 [3], а сам ген всё чаще выявляется в пищевых изолятах [14] и в изолятах, связанных с пищевыми отравлениями [5]. Аналогичная ассоциация tsst-1 с клоном ST22 MRSA описана для готовой пищи в России [15]. Частота tsst-1 среди клинических изолятов (2/5) была выше, чем в пищевых коллекциях региона, например в сыром говяжьем мясе в Монголии (17,1%) [16] и в сырых креветках в Китае (3,2%) [17].Ең маңызды эпидемиологиялық олжа — шикі сүттен, құс етінен, ет жартылай фабрикаттарынан және дайын тағамдардан бөлінген сегіз тағамдық изолятпен кластерленген екі ST22 (MRSA) изолятының анықталуы. Метициллинге төзімділіктің tsst-1 және egc кластерімен үйлесуі Қытайда сипатталған гипервирулентті ST22 MRSA желісіне тән [13]. TSST-1 өндірушілері негізінен CC5 және CC22 клондық кешендеріне жатады [3], ал геннің өзі тағамдық изоляттарда [14] және тамақтан улануға байланысты изоляттарда [5] жиі анықталуда. tsst-1-дің ST22 MRSA клонымен осыған ұқсас байланысы Ресейдегі дайын тағам үшін сипатталған [15]. Клиникалық изоляттар арасындағы tsst-1 жиілігі (2/5) өңірдегі тағамдық коллекциялардағыдан жоғары болды, мысалы Моңғолиядағы шикі сиыр етінде (17,1%) [16] және Қытайдағы шикі асшаянда (3,2%) [17].
The classical sea gene was detected only in the ST5 isolate (K2). SEA has historically been regarded as the most frequent cause of SFP, including large outbreaks [1,18]. The ST5 lineage is notable for its high adaptability and its capacity to acquire resistance and produce enterotoxins [19]; the food isolate from beef closest to K2 also carried sea. The remaining enterotoxigenic isolates (K1, K3, K4) carried only egc cluster genes and non-classical enterotoxin-like genes. A predominance of non-classical enterotoxin genes among food isolates has been reported in China and the USA [20,21], and outbreaks caused by egc-positive strains lacking classical enterotoxins have been documented [6]. Because commercial assays detect only SEA–SEE [18], such cases remain unrecognized in routine diagnostics. Isolate K5 (ST15) carried no enterotoxin genes; its etiological role in this poisoning case remains unclear and may reflect carriage or the involvement of other toxins or pathogens, which warrants phenotypic confirmation of enterotoxin production.Классический ген sea выявлен только у изолята ST5 (K2). SEA исторически считался наиболее частой причиной СПО, в том числе крупных вспышек [1,18]. Линия ST5 отличается высокой адаптивностью и способностью приобретать резистентность и продуцировать энтеротоксины [19]; ближайший к K2 пищевой изолят из говядины также нёс sea. Остальные энтеротоксигенные изоляты (K1, K3, K4) несли только гены кластера egc и неклассические энтеротоксиноподобные гены. Преобладание неклассических генов энтеротоксинов среди пищевых изолятов описано в Китае и США [20,21], а вспышки, вызванные egc-положительными штаммами без классических энтеротоксинов, задокументированы [6]. Поскольку коммерческие тест-системы выявляют только SEA–SEE [18], такие случаи остаются нераспознанными при рутинной диагностике. Изолят K5 (ST15) не нёс генов энтеротоксинов; его этиологическая роль в данном случае отравления остаётся неясной и может отражать носительство либо участие других токсинов или возбудителей, что требует фенотипического подтверждения продукции энтеротоксинов.Классикалық sea гені тек ST5 изолятында (K2) анықталды. SEA тарихи тұрғыда СТУ-дың, оның ішінде ірі өршулердің ең жиі себебі саналды [1,18]. ST5 желісі жоғары бейімділігімен әрі төзімділік иеленіп, энтеротоксин өндіру қабілетімен ерекшеленеді [19]; K2-ге ең жақын сиыр етінен бөлінген тағамдық изолят та sea алып жүрді. Қалған энтеротоксигендік изоляттар (K1, K3, K4) тек egc кластерінің гендерін және классикалық емес энтеротоксинтәрізді гендерді алып жүрді. Тағамдық изоляттар арасында классикалық емес энтеротоксин гендерінің басымдығы Қытай мен АҚШ-та сипатталған [20,21], ал классикалық энтеротоксиндері жоқ egc-оң штаммдар тудырған өршулер құжатталған [6]. Коммерциялық тест-жүйелер тек SEA–SEE анықтайтындықтан [18], мұндай жағдайлар күнделікті диагностикада танылмай қалады. K5 (ST15) изоляты энтеротоксин гендерін алып жүрмеді; оның осы улану жағдайындағы этиологиялық рөлі белгісіз болып қалады әрі тасымалдаушылықты не басқа токсиндер мен қоздырғыштардың қатысуын көрсетуі мүмкін, бұл энтеротоксин өндірісін фенотиптік растауды талап етеді.
Phenotypic β-lactam resistance was fully explained by genetic determinants: blaZ was detected in all penicillin-resistant isolates and mecA in all cefoxitin-resistant isolates. The high frequency of blaZ is consistent with its wide distribution in the global S. aureus population [22,23]. The proportion of MRSA among the clinical isolates (2/5) is comparable to the mecA frequency (38%) among clinical isolates from hospitals in Ghana [24]. The lnu(A) gene, rarely reported in S. aureus [25], proved to be a marker of the ST22 MRSA clone in our collection. Isolate K1 was phenotypically resistant to linezolid, a last-resort agent for the treatment of MRSA infections, despite the absence of the acquired genes cfr, optrA, and poxtA. Oxazolidinone resistance may result from mutations in 23S rRNA genes and in the genes encoding ribosomal proteins L3/L4 [26]; this finding requires confirmation by a reference method and targeted analysis of these loci. Given the global burden of MRSA [7], the detection of MDR ST22 MRSA isolates in children with food poisoning argues for AMR monitoring along the food chain.Фенотипическая устойчивость к β-лактамам полностью объяснялась генетическими детерминантами: blaZ выявлен у всех пенициллиноустойчивых изолятов, а mecA — у всех цефокситиноустойчивых. Высокая частота blaZ согласуется с его широким распространением в мировой популяции S. aureus [22,23]. Доля MRSA среди клинических изолятов (2/5) сопоставима с частотой mecA (38%) среди клинических изолятов из больниц Ганы [24]. Ген lnu(A), редко описываемый у S. aureus [25], оказался маркером клона ST22 MRSA в нашей коллекции. Изолят K1 был фенотипически устойчив к линезолиду — препарату резерва для лечения MRSA-инфекций — несмотря на отсутствие приобретённых генов cfr, optrA и poxtA. Устойчивость к оксазолидинонам может быть обусловлена мутациями в генах 23S рРНК и в генах рибосомных белков L3/L4 [26]; эта находка требует подтверждения референтным методом и целенаправленного анализа указанных локусов. С учётом глобального бремени MRSA [7] выявление MDR-изолятов ST22 MRSA у детей с пищевым отравлением обосновывает мониторинг АМР по пищевой цепи.β-лактамдарға фенотиптік төзімділік генетикалық детерминанттармен толық түсіндірілді: blaZ пенициллинге төзімді барлық изоляттарда, ал mecA цефокситинге төзімді барлық изоляттарда анықталды. blaZ-тың жоғары жиілігі оның әлемдік S. aureus популяциясында кең таралуымен үйлеседі [22,23]. Клиникалық изоляттар арасындағы MRSA үлесі (2/5) Гана ауруханаларының клиникалық изоляттарындағы mecA жиілігімен (38%) салыстырмалы [24]. S. aureus-та сирек сипатталатын lnu(A) гені [25] біздің коллекцияда ST22 MRSA клонының маркері болып шықты. K1 изоляты cfr, optrA және poxtA жүре пайда болған гендері болмағанына қарамастан, MRSA инфекцияларын емдеудегі резервтік препарат — линезолидке фенотиптік төзімді болды. Оксазолидинондарға төзімділік 23S рРНҚ гендеріндегі және L3/L4 рибосомалық ақуыздарын кодтайтын гендердегі мутациялардан туындауы мүмкін [26]; бұл олжа референттік әдіспен растауды және аталған локустарды мақсатты талдауды қажет етеді. MRSA-ның жаһандық ауыртпалығын ескере отырып [7], тамақтан уланған балалардан MDR ST22 MRSA изоляттарының анықталуы азық-түлік тізбегі бойынша МҚТ мониторингін негіздейді.
The regulator genes mgrA, arlR, and mepR were detected in all isolates, consistent with their conserved chromosomal nature and their role in regulating virulence factors and efflux systems [27,28]. The distribution of norA, sdrM, and fosB was lineage-specific, and the discrepancy in blaZ detection between ResFinder and CARD most likely reflects differences in the identity thresholds of the databases rather than biological differences.Гены регуляторов mgrA, arlR и mepR выявлены у всех изолятов, что согласуется с их консервативной хромосомной природой и ролью в регуляции факторов вирулентности и систем эффлюкса [27,28]. Распределение norA, sdrM и fosB было линия-специфичным, а расхождение в выявлении blaZ между ResFinder и CARD, скорее всего, отражает различия в порогах идентичности баз данных, а не биологические различия.Реттеуіш гендер mgrA, arlR және mepR барлық изоляттарда анықталды, бұл олардың консервативті хромосомалық табиғатымен әрі вируленттілік факторлары мен эффлюкс жүйелерін реттеудегі рөлімен үйлеседі [27,28]. norA, sdrM және fosB таралымы желіге тән болды, ал ResFinder мен CARD арасындағы blaZ анықтаудағы алшақтық биологиялық айырмашылықты емес, дерекқорлардың сәйкестік шектерінің айырмашылығын көрсетсе керек.
The hemolysin genes hla, hld, and hlgA/B/C were present in all isolates, consistent with their status as key virulence genes in both clinical and food isolates [23]. The lukD gene was detected in two isolates in the absence of lukE, although both subunits are required to form the functional pore-forming leukotoxin LukED [29,30]. The conserved set of adhesion genes (atl, ebp, fnbA, icaA/C, spa) and immune evasion genes (chp, scn, sbi, capsule) in all isolates, together with the lineage-specific cna, clfA, ebh, and eap/map, suggests that colonization potential is retained irrespective of ST.Гены гемолизинов hla, hld и hlgA/B/C присутствовали у всех изолятов, что согласуется с их статусом ключевых генов вирулентности как у клинических, так и у пищевых изолятов [23]. Ген lukD выявлен у двух изолятов при отсутствии lukE, хотя для образования функционального порообразующего лейкотоксина LukED необходимы обе субъединицы [29,30]. Консервативный набор генов адгезии (atl, ebp, fnbA, icaA/C, spa) и генов ускользания от иммунитета (chp, scn, sbi, капсула) у всех изолятов вместе с линия-специфичными cna, clfA, ebh и eap/map указывает на сохранение колонизационного потенциала независимо от ST.Гемолизин гендері hla, hld және hlgA/B/C барлық изоляттарда болды, бұл олардың клиникалық та, тағамдық та изоляттардағы негізгі вируленттілік гендері мәртебесімен үйлеседі [23]. lukD гені lukE болмағанда екі изолятта анықталды, алайда функционалды, тесік түзуші LukED лейкотоксинін құру үшін екі суббірлік те қажет [29,30]. Барлық изоляттардағы адгезия гендерінің (atl, ebp, fnbA, icaA/C, spa) және иммундық жүйеден жалтару гендерінің (chp, scn, sbi, капсула) консервативті жиынтығы желіге тән cna, clfA, ebh және eap/map гендерімен бірге колонизациялық әлеуеттің ST-ке қарамастан сақталатынын көрсетеді.
The limitations of this study include the small sample size (n = 5) and their origin from only two regions, which precludes statistically supported generalizations; the lack of data on the specific foods consumed by the patients; the absence of phenotypic confirmation of enterotoxin and TSST-1 production; and the use of Illumina short reads only, which does not allow precise localization of mobile genetic elements.Ограничения исследования включают малый объём выборки (n = 5) и её происхождение лишь из двух регионов, что не позволяет делать статистически обоснованные обобщения; отсутствие данных о конкретных продуктах, употреблённых пациентами; отсутствие фенотипического подтверждения продукции энтеротоксинов и TSST-1; использование только коротких прочтений Illumina, что не даёт точно локализовать мобильные генетические элементы.Зерттеудің шектеулеріне таңдаманың шағындығы (n = 5) және оның тек екі өңірден шығуы жатады, бұл статистикалық негізделген жалпылау жасауға мүмкіндік бермейді; науқастар тұтынған нақты тағамдар туралы деректердің жоқтығы; энтеротоксиндер мен TSST-1 өндірісінің фенотиптік расталмауы; тек Illumina қысқа оқуларының қолданылуы, бұл жылжымалы генетикалық элементтерді дәл локализациялауға жол бермейді.
ConclusionsЗаключениеҚорытынды
Clinical S. aureus isolates from children with food poisoning in Kazakhstan are genetically heterogeneous (ST22, ST5, ST45, ST15), and each is phylogenetically close to isolates circulating in foods in other regions of the country. The ST22 MRSA clone is of greatest concern, as it combines multidrug resistance (blaZ, mecA, lnu(A); and, in one case, phenotypic linezolid resistance) with tsst-1 and the egc cluster. Most enterotoxigenic isolates carried only non-classical enterotoxin genes that are not detected by standard assays.Клинические изоляты S. aureus от детей с пищевым отравлением в Казахстане генетически гетерогенны (ST22, ST5, ST45, ST15), и каждый филогенетически близок изолятам, циркулирующим в пищевых продуктах других регионов страны. Наибольшую обеспокоенность вызывает клон ST22 MRSA, сочетающий полирезистентность (blaZ, mecA, lnu(A); в одном случае — фенотипическая устойчивость к линезолиду) с tsst-1 и кластером egc. Большинство энтеротоксигенных изолятов несли только неклассические гены энтеротоксинов, не выявляемые стандартными тест-системами.Қазақстанда тамақтан уланған балалардан бөлінген клиникалық S. aureus изоляттары генетикалық жағынан біркелкі емес (ST22, ST5, ST45, ST15), әрі әрқайсысы елдің басқа өңірлеріндегі азық-түлікте айналымдағы изоляттарға филогенетикалық жағынан жақын. Ең үлкен алаңдаушылықты көпдәрілік төзімділікті (blaZ, mecA, lnu(A); бір жағдайда линезолидке фенотиптік төзімділік) tsst-1 және egc кластерімен ұштастыратын ST22 MRSA клоны тудырады. Энтеротоксигендік изоляттардың көпшілігі стандартты тест-жүйелермен анықталмайтын классикалық емес энтеротоксин гендерін ғана алып жүрді.
We therefore recommend integrating WGS-based typing into epidemiological investigations of food poisoning in Kazakhstan, expanding screening panels to include egc cluster genes and tsst-1, and monitoring the ST22 MRSA clone in ready-to-eat food, dairy, and meat production chains.В связи с этим мы рекомендуем включить типирование на основе ПГС в эпидемиологические расследования пищевых отравлений в Казахстане, расширить панели скрининга за счёт генов кластера egc и tsst-1 и вести мониторинг клона ST22 MRSA в цепочках производства готовой пищи, молочной и мясной продукции.Сондықтан біз Қазақстандағы тамақтан улануды эпидемиологиялық тексеруге ТГС негізіндегі типтеуді енгізуді, скрининг панельдерін egc кластерінің гендері мен tsst-1 есебінен кеңейтуді және ST22 MRSA клонын дайын тағам, сүт және ет өнімдерін өндіру тізбектерінде мониторингтеуді ұсынамыз.
Supporting InformationДополнительные материалыҚосымша материалдар
S1 Table. Genomic and phenotypic characteristics of clinical S. aureus isolates K1–K5. XLSX, downloadS1 Table. Геномные и фенотипические характеристики клинических изолятов S. aureus K1–K5. XLSX, скачатьS1 Table. K1–K5 клиникалық S. aureus изоляттарының геномдық және фенотиптік сипаттамалары. XLSX, жүктеу
Data Availability StatementДоступность данныхДеректердің қолжетімділігі
Genome assemblies of all clinical isolates have been deposited in GenBank (National Center for Biotechnology Information, USA) under accession numbers JBQWQG000000000 (K1), JBQWQH000000000 (K2), JBQWQI000000000 (K3), JBQWQJ000000000 (K4), and JBQWQK000000000 (K5). Accession numbers of the food isolates are provided in reference [9]. All other data are included in the article and its Supporting Information files (S1 Table).Сборки геномов всех клинических изолятов депонированы в GenBank (Национальный центр биотехнологической информации, США) под номерами доступа JBQWQG000000000 (K1), JBQWQH000000000 (K2), JBQWQI000000000 (K3), JBQWQJ000000000 (K4) и JBQWQK000000000 (K5). Номера доступа пищевых изолятов приведены в источнике [9]. Все прочие данные содержатся в статье и файлах дополнительных материалов (S1 Table).Барлық клиникалық изоляттардың геном жинақтары GenBank дерекқорына (Биотехнологиялық ақпараттың ұлттық орталығы, АҚШ) JBQWQG000000000 (K1), JBQWQH000000000 (K2), JBQWQI000000000 (K3), JBQWQJ000000000 (K4) және JBQWQK000000000 (K5) қолжетімділік нөмірлерімен депонирленді. Тағамдық изоляттардың қолжетімділік нөмірлері [9] дереккөзінде келтірілген. Қалған барлық деректер мақалада және қосымша материалдар файлдарында (S1 Table) қамтылған.
Author ContributionsВклад авторовАвторлардың үлесі
Conceptualization: E.Zh., S.K., A.B.; Investigation: D.B., A.B., A.T., S.K., E.Zh.; Methodology: D.B., A.B., A.T.; Project administration: A.B.; Software: A.D.; Validation: D.B., A.B., A.T.; Visualization: A.D.; Writing – original draft: S.K., E.Zh., D.B., A.B., A.T., A.D.; Writing – review & editing: S.K., E.Zh. All authors have read and approved the final version of the manuscript.Концепция: Е.Ж., С.К., А.Б.; Исследование: Д.Б., А.Б., А.Т., С.К., Е.Ж.; Методология: Д.Б., А.Б., А.Т.; Администрирование проекта: А.Б.; Программное обеспечение: А.Д.; Валидация: Д.Б., А.Б., А.Т.; Визуализация: А.Д.; Написание — первоначальный вариант: С.К., Е.Ж., Д.Б., А.Б., А.Т., А.Д.; Написание — рецензирование и редактирование: С.К., Е.Ж. Все авторы прочитали и одобрили окончательный вариант рукописи.Тұжырымдама: Е.Ж., С.Қ., А.Б.; Зерттеу: Д.Б., А.Б., А.Т., С.Қ., Е.Ж.; Әдіснама: Д.Б., А.Б., А.Т.; Жобаны басқару: А.Б.; Бағдарламалық қамтамасыз ету: А.Д.; Валидация: Д.Б., А.Б., А.Т.; Визуализация: А.Д.; Жазу — бастапқы нұсқа: С.Қ., Е.Ж., Д.Б., А.Б., А.Т., А.Д.; Жазу — рецензиялау және редакциялау: С.Қ., Е.Ж. Барлық авторлар қолжазбаның түпкілікті нұсқасын оқып, мақұлдады.
AcknowledgmentsБлагодарностиАлғыс
The authors thank the Departments of Sanitary and Epidemiological Control of the Pavlodar and Karaganda regions for providing the clinical isolates.Авторы благодарят департаменты санитарно-эпидемиологического контроля Павлодарской и Карагандинской областей за предоставление клинических изолятов.Авторлар клиникалық изоляттарды ұсынғаны үшін Павлодар және Қарағанды облыстарының санитариялық-эпидемиологиялық бақылау департаменттеріне алғыс білдіреді.
FundingФинансированиеҚаржыландыру
This work was carried out within the scientific and technical program IRN BR22885795 «Improving Food Safety» of the Ministry of Agriculture of the Republic of Kazakhstan.Работа выполнена в рамках научно-технической программы ИРН BR22885795 «Повышение безопасности пищевой продукции» Министерства сельского хозяйства Республики Казахстан.Жұмыс Қазақстан Республикасы Ауыл шаруашылығы министрлігінің ЖТН BR22885795 «Азық-түлік қауіпсіздігін арттыру» ғылыми-техникалық бағдарламасы аясында орындалды.
Competing InterestsКонфликт интересовМүдделер қақтығысы
The authors have declared that no competing interests exist.Авторы заявляют об отсутствии конфликта интересов.Авторлар мүдделер қақтығысының жоқтығын мәлімдейді.
ReferencesЛитератураӘдебиеттер
- Guo Y, Yu X, Wang J, Hua D, You Y, Wu Q, et al. A food poisoning caused by ST7 Staphylococcal aureus harboring sea gene in Hainan province, China. Frontiers in Microbiology. 2023;14:1110720. doi:10.3389/fmicb.2023.1110720
- Shen W, Wei X, Hu H, Zhu G, Sheng Y, Wang N, et al. A foodborne outbreak caused by ST8 (CC8)-spa t024 methicillin-sensitive Staphylococcus aureus harboring sea, seq, and sek — Taizhou City, Zhejiang Province, China, February 2025. China CDC Weekly. 2026;8(7):169–174. doi:10.46234/ccdcw2026.028
- Touaitia R, Ibrahim NA, Almuqri EA, Basher NS, Idres T, Touati A. Toxic shock syndrome toxin-1 (TSST-1) in Staphylococcus aureus: Prevalence, molecular mechanisms, and public health implications. Toxins. 2025;17(7):323. doi:10.3390/toxins17070323
- Ramadan HA, El-Baz AM, Goda RM, El-Sokkary MMA, El-Morsi RM. Molecular characterization of enterotoxin genes in methicillin-resistant S. aureus isolated from food poisoning outbreaks in Egypt. Journal of Health, Population and Nutrition. 2023;42(1):86. doi:10.1186/s41043-023-00416-z
- Aguirre-Sánchez JR, Chaidez-Quiroz C, Castro-del Campo N, Castro-del Campo N. Genetic characterization of Staphylococcus aureus isolates associated with toxic shock syndrome toxin production: An epidemiological and bioinformatics approach. Toxins. 2025;17(9):440. doi:10.3390/toxins17090440
- Zhao G, Lou Z, Zhu Z, Lai X, Li J, Lou X, et al. Epidemiological and molecular evidence of foodborne poisoning outbreak caused by enterotoxin gene cluster-harboring Staphylococcus aureus of new sequence type 7591. International Journal of Infectious Diseases. 2023;135:132–135. doi:10.1016/j.ijid.2023.08.005
- Antimicrobial Resistance Collaborators. Global burden of bacterial antimicrobial resistance in 2019: A systematic analysis. The Lancet. 2022;399(10325):629–655. doi:10.1016/S0140-6736(21)02724-0
- Nouws S, Bogaerts B, Verhaegen B, Denayer S, Laeremans L, Marchal K, et al. Whole genome sequencing provides an added value to the investigation of staphylococcal food poisoning outbreaks. Frontiers in Microbiology. 2021;12:750278. doi:10.3389/fmicb.2021.750278
- Kozhakhmetova SS, Zholdybayeva EV, Basharova DA, Bekbayeva A, Toleuzhanova AB, Daniyarov AZh, et al. Whole-genome analysis and phenotypic antimicrobial resistance of Staphylococcus aureus isolated from foods in Northern Kazakhstan. Frontiers in Microbiology. 2026;17:1910820. doi:10.3389/fmicb.2026.1910820
- Magiorakos AP, Srinivasan A, Carey RB, Carmeli Y, Falagas ME, Giske CG, et al. Multidrug-resistant, extensively drug-resistant and pandrug-resistant bacteria: An international expert proposal for interim standard definitions for acquired resistance. Clinical Microbiology and Infection. 2012;18(3):268–281. doi:10.1111/j.1469-0691.2011.03570.x
- Krumperman PH. Multiple antibiotic resistance indexing of Escherichia coli to identify high-risk sources of fecal contamination of foods. Applied and Environmental Microbiology. 1983;46(1):165–170. doi:10.1128/aem.46.1.165-170.1983
- Zheng X, Liang S, Wen L, Wang HZ, Bai Y, Wang Y, et al. Foodborne outbreak of enterotoxigenic Staphylococcus aureus at a school in Hebei, China. Food Research International. 2025;214:116645. doi:10.1016/j.foodres.2025.116645
- Zhao H, Wu X, Wang B, Shen L, Rao L, Wang X, et al. Phenotypic and genomic analysis of the hypervirulent ST22 methicillin-resistant Staphylococcus aureus in China. mSystems. 2023;8(3):e01242-22. doi:10.1128/msystems.01242-22
- Govari M, Pexara A. Occurrence of Staphylococcus aureus TSST-1 in foods: A review. Toxins. 2025;17(12):606. doi:10.3390/toxins17120606
- Mikhaylova Y, Shelenkov A, Chernyshkov A, Tyumentseva M, Saenko S, Egorova A, et al. Whole-genome analysis of Staphylococcus aureus isolates from ready-to-eat food in Russia. Foods. 2022;11(17):2574. doi:10.3390/foods11172574
- Dorjgochoo A, Batbayar A, Tsend-Ayush A, Erdenebayar O, Byambadorj B, Jav S, et al. Detection of virulence genes of Staphylococcus aureus isolated from raw beef for retail sale in the markets of Ulaanbaatar city, Mongolia. BMC Microbiology. 2023;23(1):372. doi:10.1186/s12866-023-03122-2
- Dai J, Huang J, Wu S, Zhang F, Li Y, Rong D, et al. Occurrence, antibiotic susceptibility, biofilm formation and molecular characterization of Staphylococcus aureus isolated from raw shrimp in China. Foods. 2023;12(14):2651. doi:10.3390/foods12142651
- Cieza MYR, Bonsaglia ECR, Rall VLM, dos Santos MV, Silva NCC. Staphylococcal enterotoxins: Description and importance in food. Pathogens. 2024;13(8):676. doi:10.3390/pathogens13080676
- Jiang S, Matuszewska M, Chen M, Hong Y, Chen Y, Wang Z, et al. Emergence and spread of ST5 methicillin-resistant Staphylococcus aureus with accessory gene regulator dysfunction: Genomic insights and antibiotic resistance. Microbiological Research. 2025;297:128196. doi:10.1016/j.micres.2025.128196
- Chen Q, Zhao G, Yang W, Chen F, Qi Y, Lou Z. Investigation into the prevalence of enterotoxin genes and genetic background of Staphylococcus aureus isolates from retail foods in Hangzhou, China. BMC Microbiology. 2023;23(1):294. doi:10.1186/s12866-023-03027-0
- Faraj R, Ramadan H, Bentum KE, Alkaraghulli B, Woube Y, Hassan Z, et al. Antimicrobial resistance, virulence gene profiling, and spa typing of Staphylococcus aureus isolated from retail chicken meat in Alabama, USA. Pathogens. 2025;14(2):107. doi:10.3390/pathogens14020107
- Pennone V, Prieto M, Álvarez-Ordóñez A, Cobo-Diaz JF. Antimicrobial resistance genes analysis of publicly available Staphylococcus aureus genomes. Antibiotics. 2022;11(11):1632. doi:10.3390/antibiotics11111632
- Alkuraythi DM, Alkhulaifi MM, Binjomah AZ, Alarwi M, Mujallad MI, Alharbi SA, et al. Comparative genomic analysis of antibiotic resistance and virulence genes in Staphylococcus aureus isolates from patients and retail meat. Frontiers in Cellular and Infection Microbiology. 2024;13:1339339. doi:10.3389/fcimb.2023.1339339
- Egyir B, Owusu-Nyantakyi C, Bortey A, Rabbi Amuasi G, Owusu FA, Boateng WB, et al. Whole genome sequencing revealed high proportions of ST152 MRSA among clinical Staphylococcus aureus isolates from ten hospitals in Ghana. mSphere. 2024;9(12):e00446-24. doi:10.1128/msphere.00446-24
- Szczuka E, Porada K, Wesołowska M, Łęska B. Occurrence and characteristics of Staphylococcus aureus isolated from dairy products. Molecules. 2022;27(14):4649. doi:10.3390/molecules27144649
- Mlynarczyk-Bonikowska B, Kowalewski C, Krolak-Ulinska A, Marusza W. Molecular mechanisms of drug resistance in Staphylococcus aureus. International Journal of Molecular Sciences. 2022;23(15):8088. doi:10.3390/ijms23158088
- Guo X, Wang L, Zhang J, Liu Q, Wang B, Liu D, et al. Thwarting resistance: MgrA inhibition with methylophiopogonanone A unveils a new battlefront against S. aureus. npj Biofilms and Microbiomes. 2024;10(1):15. doi:10.1038/s41522-024-00485-w
- Edet UO, Meseko CA, Okoroiwu HU, Elizabeth M, Mkpuma N, Cecilia OKI, et al. Profile and evolution of antimicrobial resistance genes in Staphylococcus aureus whole genomes in Africa revealed by phylogeography and bioinformatics. Scientific Reports. 2025;15(1):31476. doi:10.1038/s41598-025-01398-0
- Elbargisy RM. Distribution of leukocidins, exfoliative toxins, and selected resistance genes among methicillin-resistant and methicillin-sensitive Staphylococcus aureus clinical strains in Egypt. The Open Microbiology Journal. 2022;16:e2204210. doi:10.2174/18742858-v16-e2204210
- Lu C, Xiao W, Yu H, Song W, Zhou Z, Dong N, et al. Genomic analysis of foodborne Staphylococcus aureus obtained from unannounced food inspections between 2012 and 2021 in East China. FEMS Microbiology Letters. 2024;371:fnae062. doi:10.1093/femsle/fnae062