Following Protons through Cytochrome c Oxidase by Infrared Spectroscopy: Current Results and Research Prospects Отслеживание протонов в цитохром c-оксидазе методом инфракрасной спектроскопии: современные результаты и перспективы исследований Инфрақызыл спектроскопия арқылы цитохром c-оксидазадағы протондарды бақылау: қазіргі нәтижелер мен зерттеу перспективалары
AbstractАннотацияАңдатпа
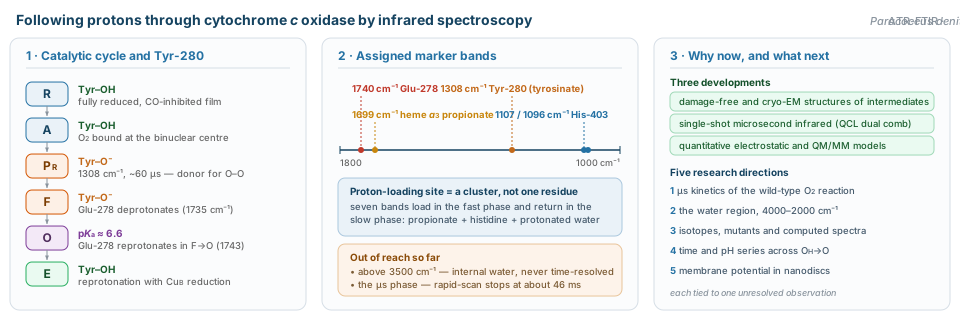
Cytochrome c oxidase (CcO) couples the reduction of O2 to water with proton pumping across the membrane, but the protonation events that link the two processes are only partly resolved. This Perspective summarises a series of static and time-resolved ATR-FTIR studies of the aa3-type CcO from Paracoccus denitrificans published between 2006 and 2020 and places them in the context of recent structural and spectroscopic work. The FTIR studies assigned infrared signatures to the four redox centres, provided strong evidence that the cross-linked Tyr-280 is the proton donor for O–O bond scission, followed its protonation state around the catalytic cycle, resolved deprotonation and reprotonation of Glu-278 during the oxygen reaction, and provided infrared evidence consistent with a proton-loading site made up of several groups. Three developments make it timely to return to these questions: damage-free and cryo-EM structures of catalytic intermediates, single-shot microsecond infrared spectroscopy, and quantitative electrostatic and QM/MM models. Five research directions are proposed, each tied to a specific unresolved observation.
Цитохром c-оксидаза (CcO) сопрягает восстановление O2 до воды с перекачкой протонов через мембрану, однако события протонирования, связывающие эти два процесса, выяснены лишь отчасти. В настоящей работе обобщена серия статических и времяразрешённых ATR-FTIR-исследований CcO типа aa3 из Paracoccus denitrificans, опубликованных в период с 2006 по 2020 год, и они помещены в контекст недавних структурных и спектроскопических работ. Эти FTIR-исследования отнесли инфракрасные сигнатуры к четырём редокс-центрам, предоставили веские доказательства того, что сшитый Tyr-280 служит донором протона для разрыва связи O–O, проследили его состояние протонирования на протяжении каталитического цикла, разрешили депротонирование и репротонирование Glu-278 в ходе кислородной реакции и дали инфракрасные свидетельства, согласующиеся с представлением о протон-загрузочном сайте, образованном несколькими группами. Три обстоятельства делают возвращение к этим вопросам своевременным: структуры каталитических интермедиатов, полученные без радиационных повреждений и методом криоэлектронной микроскопии; однократная (single-shot) микросекундная инфракрасная спектроскопия; количественные электростатические и QM/MM-модели. Предложены пять направлений исследований, каждое из которых привязано к конкретному неразрешённому наблюдению.
Цитохром c-оксидаза (CcO) O2-нің суға дейін тотықсыздануын мембрана арқылы протондарды айдаумен ұштастырады, алайда осы екі процесті байланыстыратын протондану оқиғалары тек ішінара ғана анықталған. Бұл Перспективада 2006–2020 жылдар аралығында жарияланған Paracoccus denitrificans бактериясының aa3-типті CcO ферментін зерттеген статикалық және уақытпен ажыратылған ATR-FTIR жұмыстарының сериясы жинақталып, олар соңғы құрылымдық және спектроскопиялық зерттеулер аясында қарастырылады. Бұл FTIR-зерттеулер инфрақызыл сигнатураларды төрт редокс-орталыққа телиді, тігілген Tyr-280-дің O–O байланысын үзуге арналған протон доноры екенін дәлелдейтін салмақты деректер берді, оның каталитикалық цикл бойындағы протондану күйін қадағалады, оттегі реакциясы кезіндегі Glu-278-дің депротондануы мен қайта протондануын ажыратты және протон жүктеу сайтының бірнеше топтан құралатыны туралы түсінікке сәйкес келетін инфрақызыл дәлелдер ұсынды. Үш жағдай осы сұрақтарға қайта оралуды өзекті етеді: каталитикалық аралық өнімдердің зақымсыз және криоэлектронды микроскопиялық құрылымдары, бір реттік (single-shot) микросекундтық инфрақызыл спектроскопия, сондай-ақ сандық электростатикалық және QM/MM модельдері. Әрқайсысы нақты шешілмеген бақылауға байланыстырылған бес зерттеу бағыты ұсынылады.
KeywordsКлючевые словаТүйін сөздер
1. Introduction 1. Введение 1. Кіріспе
Cytochrome c oxidase (CcO, complex IV) is the terminal enzyme of the respiratory chain in mitochondria and many aerobic bacteria. Electrons from cytochrome c pass through CuA and heme a to the binuclear centre (BNC) formed by heme a3 and CuB, where O2 is reduced to water. For every electron, one proton is consumed in this chemistry and a second is pumped across the membrane [1,2]. In A-type oxidases, protons enter from the negatively charged side of the membrane through the D- and K-channels. Mutagenesis of the yeast mitochondrial enzyme indicates that the D-channel carries the pumped protons there as it does in bacteria [3], although a role for the H-channel is still argued for the bovine enzyme [4].
The catalytic cycle runs through the intermediates R, A, P, F, O and E [1,5]. Electron transfer and oxygen chemistry in this cycle are comparatively well described. What is still incomplete is a time-ordered account of which groups carry the protons at each step. Infrared difference spectroscopy is one of the few methods that report directly on the protonation and hydrogen bonding of individual groups in a working protein [6].
Between 2006 and 2020, a series of attenuated total reflection (ATR) FTIR studies of the aa3-type CcO from Paracoccus denitrificans addressed this problem [7–14]. This Perspective summarises what those studies established (Section 2, Table 1 and Figure 1), sets out what they left open in the light of later work (Section 3) and proposes directions for further research (Section 4). Residue numbers refer to the P. denitrificans enzyme unless stated otherwise.
Цитохром c-оксидаза (CcO, комплекс IV) — терминальный фермент дыхательной цепи митохондрий и многих аэробных бактерий. Электроны от цитохрома c проходят через CuA и гем a к биядерному центру (БЯЦ), образованному гемом a3 и CuB, где O2 восстанавливается до воды. На каждый электрон один протон расходуется в этой химической реакции, а второй перекачивается через мембрану [1,2]. У оксидаз A-типа протоны поступают с отрицательно заряженной стороны мембраны по D- и K-каналам. Мутагенез митохондриального фермента дрожжей показывает, что там, как и у бактерий, перекачиваемые протоны переносит D-канал [3], хотя для бычьего фермента роль H-канала всё ещё обсуждается [4].
Каталитический цикл проходит через интермедиаты R, A, P, F, O и E [1,5]. Перенос электронов и химия кислорода в этом цикле описаны сравнительно хорошо. Чего по-прежнему недостаёт — так это упорядоченной во времени картины того, какие группы несут протоны на каждом этапе. Разностная инфракрасная спектроскопия — один из немногих методов, напрямую сообщающих о протонировании и водородном связывании отдельных групп в работающем белке [6].
В период с 2006 по 2020 год эту задачу решала серия работ по FTIR-спектроскопии нарушенного полного внутреннего отражения (ATR) на CcO типа aa3 из Paracoccus denitrificans [7–14]. В настоящей работе обобщается то, что эти исследования установили (раздел 2, таблица 1 и рисунок 1), излагается то, что они оставили открытым в свете более поздних работ (раздел 3), и предлагаются направления дальнейших исследований (раздел 4). Номера остатков, если не указано иное, относятся к ферменту P. denitrificans.
Цитохром c-оксидаза (CcO, IV кешен) — митохондриялардағы және көптеген аэробты бактериялардағы тыныс алу тізбегінің терминалдық ферменті. Цитохром c-дан келген электрондар CuA мен гем a арқылы гем a3 және CuB түзетін екіядролық орталыққа (ЕЯО) өтеді, онда O2 суға дейін тотықсызданады. Әрбір электронға шаққанда бір протон осы химиялық реакцияда жұмсалады, ал екіншісі мембрана арқылы айдалады [1,2]. A-типті оксидазаларда протондар мембрананың теріс зарядталған жағынан D- және K-арналары арқылы кіреді. Ашытқының митохондриялық ферментін мутагенездеу сол жерде де, бактериялардағы сияқты, айдалатын протондарды D-арнасы тасымалдайтынын көрсетеді [3], дегенмен сиыр ферменті үшін H-арнасының рөлі әлі де талқылануда [4].
Каталитикалық цикл R, A, P, F, O және E аралық өнімдері арқылы өтеді [1,5]. Бұл циклдегі электрондардың тасымалы мен оттегі химиясы салыстырмалы түрде жақсы сипатталған. Әлі де толық емес нәрсе — әр қадамда протондарды қай топтардың тасымалдайтыны туралы уақыт бойынша реттелген түсінік. Айырымдық инфрақызыл спектроскопия — жұмыс істеп тұрған ақуыздағы жекелеген топтардың протондануы мен сутектік байланысы туралы тікелей мәлімет беретін санаулы әдістердің бірі [6].
2006–2020 жылдар аралығында бұл мәселені Paracoccus denitrificans бактериясының aa3-типті CcO ферментін толық ішкі шағылысудың бұзылуы (ATR) негізіндегі FTIR әдісімен зерттеген жұмыстар сериясы қарастырды [7–14]. Бұл Перспективада аталған зерттеулердің нені анықтағаны жинақталып (2-бөлім, 1-кесте және 1-сурет), кейінгі жұмыстар аясында нені ашық қалдырғаны баяндалады (3-бөлім) және одан әрі зерттеу бағыттары ұсынылады (4-бөлім). Қалдықтардың нөмірлері, өзгеше көрсетілмесе, P. denitrificans ферментіне қатысты.
2. What the FTIR Studies Established 2. Что установили FTIR-исследования 2. FTIR-зерттеулер нені анықтады
2.1 Equilibrium Spectra 2.1 Равновесные спектры 2.1 Тепе-теңдік спектрлері
Electrochemical redox titrations followed by ATR-FTIR sorted most of the infrared difference bands into four groups, one for each redox centre [7]. Twelve bands titrated with the highest midpoint potential (412 mV at pH 6.5, with a slope of 52 mV per pH unit in the alkaline range) and were linked to CuB. Bands with a pH-independent potential of 250 mV were assigned to CuA. The two hemes had almost equal potentials (359 and 350 mV at pH 8.0) and a strong negative redox interaction (−115 mV). The band shift of protonated Glu-278 at 1737/1746 cm−1 followed the redox state of heme a. A study over the range pH 5.2–9.5 then showed two pH-dependent processes in the reduced-minus-oxidised spectrum, with apparent pKa values of 6.6 and 8.4, and a sharp O–H band of an asymmetrically hydrogen-bonded water molecule that appears on reduction [8].
Электрохимические редокс-титрования с последующей регистрацией ATR-FTIR позволили распределить большинство инфракрасных разностных полос по четырём группам — по одной на каждый редокс-центр [7]. Двенадцать полос титровались с наибольшим срединным потенциалом (412 мВ при pH 6,5, с наклоном 52 мВ на единицу pH в щелочной области) и были связаны с CuB. Полосы с не зависящим от pH потенциалом 250 мВ отнесены к CuA. Два гема имели почти равные потенциалы (359 и 350 мВ при pH 8,0) и сильное отрицательное редокс-взаимодействие (−115 мВ). Сдвиг полосы протонированного Glu-278 при 1737/1746 см−1 следовал за редокс-состоянием гема a. Затем исследование в диапазоне pH 5,2–9,5 выявило в спектре «восстановленный минус окисленный» два pH-зависимых процесса с кажущимися значениями pKa 6,6 и 8,4, а также узкую полосу O–H асимметрично связанной водородной связью молекулы воды, появляющуюся при восстановлении [8].
Электрохимиялық редокс-титрлеу және одан кейінгі ATR-FTIR тіркеу инфрақызыл айырымдық жолақтардың көпшілігін төрт топқа — әр редокс-орталыққа біреуден — бөлуге мүмкіндік берді [7]. Он екі жолақ ең жоғары орташа потенциалмен титрленді (pH 6,5 кезінде 412 мВ, сілтілік аймақта pH бірлігіне 52 мВ көлбеулікпен) және CuB-мен байланыстырылды. pH-қа тәуелсіз 250 мВ потенциалы бар жолақтар CuA-ға телінді. Екі гемнің потенциалдары бір-біріне жуық болды (pH 8,0 кезінде 359 және 350 мВ) әрі күшті теріс редокс-әрекеттесу байқалды (−115 мВ). Протондалған Glu-278-дің 1737/1746 см−1 маңындағы жолағының ығысуы гем a-ның редокс-күйіне сәйкес өзгерді. Кейін pH 5,2–9,5 аралығындағы зерттеу «тотықсызданған минус тотыққан» спектрінде pKa мәндері 6,6 және 8,4 болатын екі pH-тәуелді процесті, сондай-ақ тотықсыздану кезінде пайда болатын, сутектік байланысы асимметриялы су молекуласының айқын O–H жолағын көрсетті [8].
2.2 Time-Resolved Spectra of the Oxygen Reaction 2.2 Времяразрешённые спектры кислородной реакции 2.2 Оттегі реакциясының уақытпен ажыратылған спектрлері
A flow-flash chamber on the ATR prism allowed the reaction of the fully reduced, CO-inhibited enzyme with O2 to be repeated many times on one protein film and recorded in rapid-scan mode [9]. In the D124N variant, where the entrance of the D-channel is blocked, this showed deprotonation of Glu-278 on formation of F (trough at 1735 cm−1) and its reprotonation in the F→O step (1743 cm−1), which the mutation makes rate-limiting [9].
In the E278Q variant the reaction stops at the PR intermediate. Its formation, in about 60 µs, was accompanied by a band at 1308 cm−1 characteristic of the deprotonated cross-linked Tyr-280 and by an electrometric signal equivalent to proton movement over about 4 Å. These results strongly supported Tyr-280 as the proton donor for O–O bond scission [10]. Following the same band through the rest of the cycle showed that the tyrosine stays fully deprotonated in F (pKa below about 5.5), has a pKa of about 6.6 in O whether that state is reached kinetically or at equilibrium, and, as inferred from equilibrium redox titrations, is fully reprotonated in the O→E step together with reduction of CuB [11].
Камера быстрого смешения со вспышкой (flow-flash) на ATR-призме позволила многократно повторять реакцию полностью восстановленного, ингибированного CO фермента с O2 на одной и той же белковой плёнке и регистрировать её в режиме быстрого сканирования [9]. У варианта D124N, где вход D-канала заблокирован, это выявило депротонирование Glu-278 при образовании F (минимум при 1735 см−1) и его репротонирование на стадии F→O (1743 см−1), которую мутация делает лимитирующей [9].
У варианта E278Q реакция останавливается на интермедиате PR. Его образование примерно за 60 мкс сопровождалось полосой при 1308 см−1, характерной для депротонированного сшитого Tyr-280, и электрометрическим сигналом, эквивалентным перемещению протона примерно на 4 Å. Эти результаты убедительно подтвердили, что Tyr-280 является донором протона для разрыва связи O–O [10]. Прослеживание той же полосы на остальной части цикла показало, что тирозин остаётся полностью депротонированным в F (pKa ниже примерно 5,5), имеет pKa около 6,6 в состоянии O — независимо от того, достигнуто ли оно кинетически или равновесно, — и, как следует из равновесных редокс-титрований, полностью репротонируется на стадии O→E одновременно с восстановлением CuB [11].
ATR-призмасындағы жарқылмен жылдам араластыру (flow-flash) камерасы толық тотықсызданған, CO-мен тежелген ферменттің O2-мен реакциясын бір ақуыз қабықшасында көп мәрте қайталауға және оны жылдам сканерлеу режимінде тіркеуге мүмкіндік берді [9]. D-арнасының кіреберісі бітелген D124N нұсқасында бұл F түзілген кезде Glu-278-дің депротондануын (1735 см−1 маңындағы минимум) және мутация шектеуші етіп жасайтын F→O сатысында оның қайта протондануын (1743 см−1) көрсетті [9].
E278Q нұсқасында реакция PR аралық өнімінде тоқтайды. Оның шамамен 60 мкс ішінде түзілуі депротондалған тігілген Tyr-280-ге тән 1308 см−1 жолағымен және протонның шамамен 4 Å қашықтыққа жылжуына балама электрометриялық сигналмен қатар жүрді. Бұл нәтижелер Tyr-280-дің O–O байланысын үзуге арналған протон доноры екенін сенімді түрде қолдады [10]. Сол жолақты циклдің қалған бөлігінде қадағалау тирозиннің F күйінде толық депротондалған күйде қалатынын (pKa шамамен 5,5-тен төмен), O күйінде — ол кинетикалық жолмен де, тепе-теңдік жолмен де алынсын — pKa мәні шамамен 6,6 болатынын және тепе-теңдік редокс-титрлеуден шығатындай, O→E сатысында CuB-нің тотықсыздануымен бірге толық қайта протондалатынын көрсетті [11].
2.3 The Proton-Loading Site 2.3 Протон-загрузочный сайт 2.3 Протон жүктеу сайты
The N131V and D124N enzymes do not pump protons, yet they show a fast electrogenic phase that is too large for proton transfer to the BNC alone. It was attributed to loading of the proton-loading site (PLS) above the hemes, with a conserved D-channel tyrosine (Tyr-35) as a possible internal donor, followed by return of the proton to the BNC [12]. The infrared counterpart was reported in 2020: seven bands are present in the unresolved fast phase of both variants, reappear with opposite sign in the slow phase and are absent, or within the noise, in E278Q [14]. Some of them should therefore reflect protonation of the PLS. The band near 1699 cm−1 was attributed to a partially protonated A-propionate of heme a3, and bands at 1096 and 1107 cm−1 in the double-difference spectra to a histidine, possibly His-403. Protonated water clusters were considered the most probable further contributor, although their weak absorbance could not be seen in this window. This agrees with electrostatic and multiscale calculations that describe the PLS as a cluster of groups, or as a protonated water cluster, rather than a single residue [15,16].
Ферменты N131V и D124N не перекачивают протоны, однако у них наблюдается быстрая электрогенная фаза, слишком большая, чтобы её можно было объяснить одним лишь переносом протона к БЯЦ. Её связали с загрузкой протон-загрузочного сайта (ПЗС), расположенного над гемами, с консервативным тирозином D-канала (Tyr-35) в качестве возможного внутреннего донора и последующим возвратом протона к БЯЦ [12]. Инфракрасный аналог этого явления описан в 2020 году: семь полос присутствуют в неразрешённой быстрой фазе обоих вариантов, вновь появляются с противоположным знаком в медленной фазе и отсутствуют — или лежат в пределах шума — у E278Q [14]. Следовательно, часть из них должна отражать протонирование ПЗС. Полосу около 1699 см−1 отнесли к частично протонированному A-пропионату гема a3, а полосы при 1096 и 1107 см−1 в спектрах двойной разности — к гистидину, возможно His-403. Наиболее вероятным дополнительным источником сигнала сочли протонированные кластеры воды, хотя их слабое поглощение в этом окне увидеть не удалось. Это согласуется с электростатическими и многомасштабными расчётами, которые описывают ПЗС как кластер групп или как протонированный кластер воды, а не как единственный остаток [15,16].
N131V және D124N ферменттері протондарды айдамайды, дегенмен оларда жылдам электрогенді фаза байқалады, ол тек ЕЯО-ға протон тасымалдауымен түсіндіруге тым үлкен. Оны гемдердің үстінде орналасқан протон жүктеу сайтының (ПЖС) жүктелуімен байланыстырды; ықтимал ішкі донор ретінде D-арнасының консервативті тирозині (Tyr-35) қарастырылды, одан кейін протон ЕЯО-ға қайтады [12]. Бұл құбылыстың инфрақызыл баламасы 2020 жылы сипатталды: екі нұсқаның да ажыратылмаған жылдам фазасында жеті жолақ бар, олар баяу фазада қарама-қарсы таңбамен қайта пайда болады және E278Q нұсқасында жоқ немесе шу деңгейінде [14]. Демек, олардың бір бөлігі ПЖС протондануын көрсетуге тиіс. 1699 см−1 маңындағы жолақ гем a3-тің ішінара протондалған A-пропионатына, ал қос айырым спектрлеріндегі 1096 және 1107 см−1 жолақтары гистидинге, мүмкін His-403-ке телінді. Сигналдың ең ықтимал қосымша көзі ретінде протондалған су кластерлері қарастырылды, дегенмен олардың әлсіз жұтылуын бұл терезеде көру мүмкін болмады. Бұл ПЖС-ті жалғыз қалдық емес, топтар кластері немесе протондалған су кластері ретінде сипаттайтын электростатикалық және көпмасштабты есептеулермен үйлеседі [15,16].
2.4 Oxidised States 2.4 Окисленные состояния 2.4 Тотыққан күйлер
The oxidised enzyme exists in a relaxed form (O) and in a metastable form (OH) that is produced by oxidation of the reduced enzyme, and only reduction of OH is coupled to proton pumping [17]. Static O→R spectra of the wild-type enzyme and time-resolved R→O spectra of the wild-type, N131V and D124N enzymes, recorded at acidic and alkaline pH (D124N at pH 9.0 only), were indistinguishable between 1800 and 1000 cm−1 [13]. Any structural difference between the two forms therefore lies outside this window or below the detection limit of those measurements.
Окисленный фермент существует в релаксированной форме (O) и в метастабильной форме (OH), образующейся при окислении восстановленного фермента, причём только восстановление OH сопряжено с перекачкой протонов [17]. Статические спектры O→R фермента дикого типа и времяразрешённые спектры R→O ферментов дикого типа, N131V и D124N, зарегистрированные при кислых и щелочных значениях pH (D124N — только при pH 9,0), оказались неразличимы в диапазоне 1800–1000 см−1 [13]. Следовательно, любое структурное различие между двумя формами лежит за пределами этого окна или ниже предела обнаружения этих измерений.
Тотыққан фермент релаксацияланған (O) және тотықсызданған ферменттің тотығуы нәтижесінде түзілетін метатұрақты (OH) түрінде болады, әрі тек OH-тің тотықсыздануы ғана протондарды айдаумен ұштасады [17]. Жабайы типті ферменттің статикалық O→R спектрлері мен жабайы типті, N131V және D124N ферменттерінің қышқылдық және сілтілік pH мәндерінде тіркелген уақытпен ажыратылған R→O спектрлері (D124N тек pH 9,0 кезінде) 1800–1000 см−1 аралығында ажыратылмайтын болып шықты [13]. Демек, екі түрдің арасындағы кез келген құрылымдық айырмашылық осы терезеден тыс жатыр немесе аталған өлшеулердің анықтау шегінен төмен.
Table 1.Таблица 1.1-кесте. ATR-FTIR studies of cytochrome c oxidase from Paracoccus denitrificans summarised in this Perspective. Исследования цитохром c-оксидазы из Paracoccus denitrificans методом ATR-FTIR, обобщённые в настоящей работе. Осы Перспективада жинақталған Paracoccus denitrificans цитохром c-оксидазасын ATR-FTIR әдісімен зерттеу жұмыстары.
| Reference, yearСсылка, годСілтеме, жыл | ApproachПодходТәсіл | Enzyme formФорма ферментаФермент түрі | Main resultОсновной результатНегізгі нәтиже |
|---|---|---|---|
| [7], 2006 | Electrochemical redox titration followed by ATR-FTIRЭлектрохимическое редокс-титрование с регистрацией ATR-FTIRЭлектрохимиялық редокс-титрлеу және ATR-FTIR тіркеу | Wild typeДикий типЖабайы тип | Infrared bands grouped by redox centre. Em: CuB 412 mV (pH 6.5); CuA 250 mV; heme a 359 mV and heme a3 350 mV (pH 8.0); heme–heme interaction −115 mVИнфракрасные полосы сгруппированы по редокс-центрам. Em: CuB 412 мВ (pH 6,5); CuA 250 мВ; гем a 359 мВ и гем a3 350 мВ (pH 8,0); взаимодействие гем–гем −115 мВИнфрақызыл жолақтар редокс-орталықтар бойынша топтастырылды. Em: CuB 412 мВ (pH 6,5); CuA 250 мВ; гем a 359 мВ және гем a3 350 мВ (pH 8,0); гем–гем әрекеттесуі −115 мВ |
| [8], 2007 | Reduced-minus-oxidised spectra, pH 5.2–9.5; D2O and H218O exchangeСпектры «восстановленный минус окисленный», pH 5,2–9,5; обмен на D2O и H218O«Тотықсызданған минус тотыққан» спектрлері, pH 5,2–9,5; D2O және H218O алмасуы | Wild typeДикий типЖабайы тип | Two protolytic processes (pKa 6.6 and 8.4); O–H band of a water molecule appears on reductionДва протолитических процесса (pKa 6,6 и 8,4); при восстановлении появляется полоса O–H молекулы водыЕкі протолиттік процесс (pKa 6,6 және 8,4); тотықсыздану кезінде су молекуласының O–H жолағы пайда болады |
| [9], 2007 | Flow-flash rapid-scan ATR-FTIR of the O2 reactionFlow-flash ATR-FTIR кислородной реакции в режиме быстрого сканированияОттегі реакциясының flow-flash ATR-FTIR жылдам сканерлеуі | D124N | Glu-278 deprotonates on formation of F and is reprotonated in F→OGlu-278 депротонируется при образовании F и репротонируется на стадии F→OGlu-278 F түзілгенде депротондалады және F→O сатысында қайта протондалады |
| [10], 2008 | Time-resolved optical, FTIR and electrometric measurementsВремяразрешённые оптические, FTIR- и электрометрические измеренияУақытпен ажыратылған оптикалық, FTIR және электрометриялық өлшеулер | E278Q | Strong evidence that the cross-linked Tyr-280 donates the proton for O–O bond scission (1308 cm−1; about 60 µs; about 4 Å)Веские доказательства того, что сшитый Tyr-280 отдаёт протон для разрыва связи O–O (1308 см−1; около 60 мкс; около 4 Å)Тігілген Tyr-280-дің O–O байланысын үзуге протон беретінінің салмақты дәлелі (1308 см−1; шамамен 60 мкс; шамамен 4 Å) |
| [11], 2008 | Time-resolved and equilibrium FTIRВремяразрешённая и равновесная FTIR-спектроскопияУақытпен ажыратылған және тепе-теңдік FTIR | N131V, wild typeN131V, дикий типN131V, жабайы тип | Tyr-280 deprotonated in F (pKa < 5.5); pKa ≈ 6.6 in O; reprotonation at O→E with CuB reduction inferred from equilibrium titrationsTyr-280 депротонирован в F (pKa < 5,5); pKa ≈ 6,6 в O; репротонирование на стадии O→E вместе с восстановлением CuB выведено из равновесных титрованийTyr-280 F күйінде депротондалған (pKa < 5,5); O күйінде pKa ≈ 6,6; O→E сатысында CuB тотықсыздануымен бірге қайта протондану тепе-теңдік титрлеуден шығарылды |
| [12], 2010 | Time-resolved optical, FTIR and electrometric measurementsВремяразрешённые оптические, FTIR- и электрометрические измеренияУақытпен ажыратылған оптикалық, FTIR және электрометриялық өлшеулер | D124N, D124N/Y35F, N131V | Non-pumping variants still load the PLS; Tyr-35 proposed as internal proton donorНе перекачивающие варианты всё же загружают ПЗС; в качестве внутреннего донора протона предложен Tyr-35Айдамайтын нұсқалар ПЖС-ті бәрібір жүктейді; ішкі протон доноры ретінде Tyr-35 ұсынылды |
| [13], 2020 | Static O→R (wild type) and time-resolved R→O FTIR, pH 6.0–9.0Статические O→R (дикий тип) и времяразрешённые R→O FTIR, pH 6,0–9,0Статикалық O→R (жабайы тип) және уақытпен ажыратылған R→O FTIR, pH 6,0–9,0 | Wild type, N131V, D124NДикий тип, N131V, D124NЖабайы тип, N131V, D124N | No difference between O and OH at 1800–1000 cm−1Различий между O и OH в диапазоне 1800–1000 см−1 не обнаружено1800–1000 см−1 аралығында O мен OH арасында айырмашылық жоқ |
| [14], 2020 | Flow-flash rapid-scan ATR-FTIR; double-difference spectraFlow-flash ATR-FTIR в режиме быстрого сканирования; спектры двойной разностиFlow-flash ATR-FTIR жылдам сканерлеу; қос айырым спектрлері | N131V, D124N, E278Q | Seven bands meet the criteria for PLS protonation; candidates are the heme a3 A-propionate (about 1699 cm−1), His-403 (1096 and 1107 cm−1) and waterСемь полос удовлетворяют критериям протонирования ПЗС; кандидаты — A-пропионат гема a3 (около 1699 см−1), His-403 (1096 и 1107 см−1) и водаЖеті жолақ ПЖС протондану өлшемшарттарына сай келеді; үміткерлер — гем a3-тің A-пропионаты (шамамен 1699 см−1), His-403 (1096 және 1107 см−1) және су |
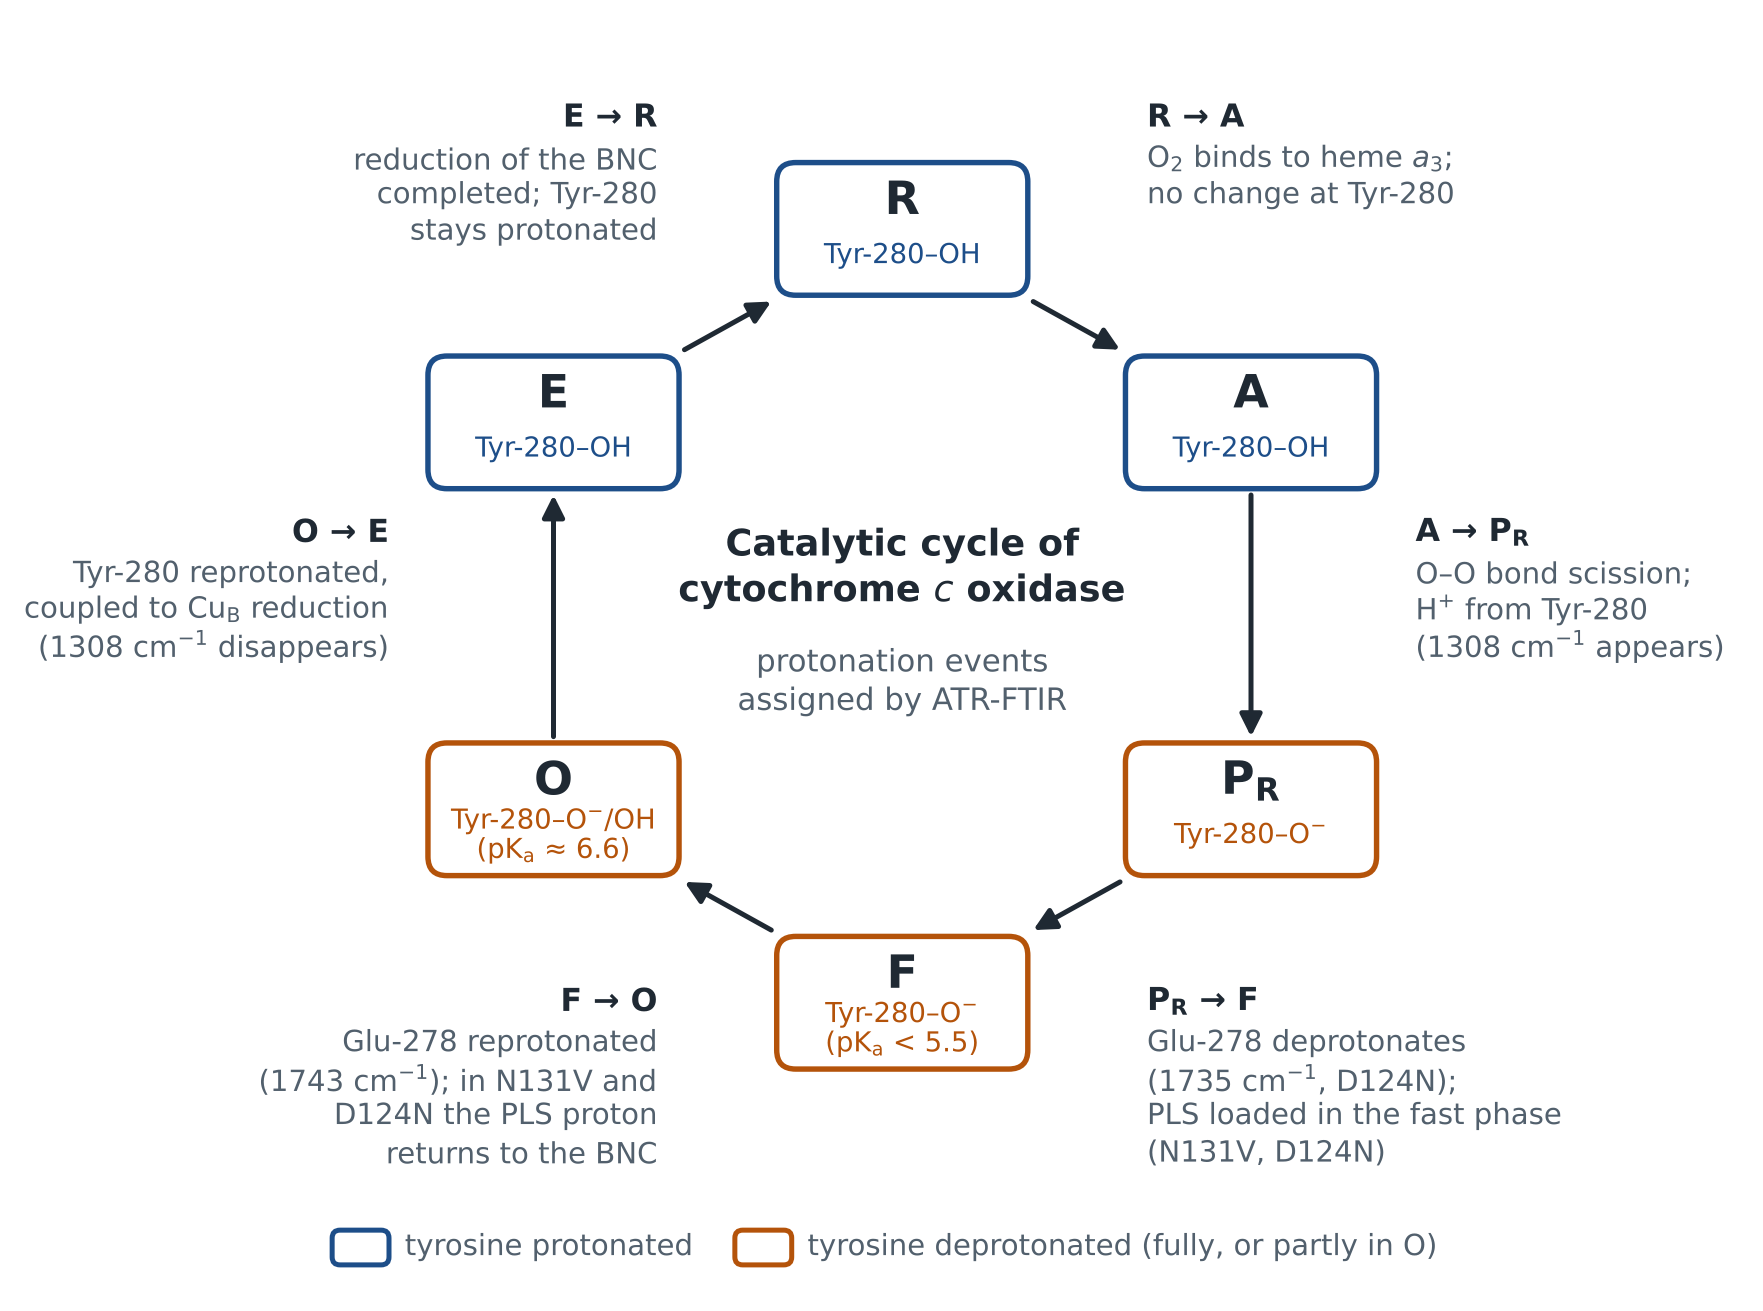
Figure 1. Protonation events in the catalytic cycle of cytochrome c oxidase from Paracoccus denitrificans assigned by ATR-FTIR spectroscopy. Boxes show the intermediates and the protonation state of the cross-linked Tyr-280 [10,11]. Glu-278 changes were resolved in the D124N variant [9]; loading of the proton-loading site (PLS) was inferred for the non-pumping N131V and D124N variants [12,14]. BNC, binuclear centre.
Рисунок 1. События протонирования в каталитическом цикле цитохром c-оксидазы из Paracoccus denitrificans, установленные методом ATR-FTIR-спектроскопии. В прямоугольниках показаны интермедиаты и состояние протонирования сшитого Tyr-280 [10,11]. Изменения Glu-278 были разрешены у варианта D124N [9]; загрузка протон-загрузочного сайта (ПЗС) выведена для не перекачивающих вариантов N131V и D124N [12,14]. БЯЦ — биядерный центр.
1-сурет. ATR-FTIR спектроскопиясы арқылы анықталған Paracoccus denitrificans цитохром c-оксидазасының каталитикалық циклындағы протондану оқиғалары. Тіктөртбұрыштарда аралық өнімдер мен тігілген Tyr-280-дің протондану күйі көрсетілген [10,11]. Glu-278 өзгерістері D124N нұсқасында ажыратылды [9]; протон жүктеу сайтының (ПЖС) жүктелуі айдамайтын N131V және D124N нұсқалары үшін қорытындыланды [12,14]. ЕЯО — екіядролық орталық.
3. Open Questions 3. Нерешённые вопросы 3. Шешілмеген мәселелер
Four limitations of the work summarised above define what should be done next.
The O and OH states. Serial femtosecond crystallography and resonance Raman spectroscopy of bovine CcO indicate that the relaxed O state has hydroxide on heme a3 and water on CuB, as in OH, but a neutral protonated cross-linked tyrosine, whereas the tyrosine is taken to be a tyrosinate in OH [18]. A cryo-EM study of the P. denitrificans enzyme at up to 1.9 Å resolution instead interpreted the active-site density of the O state as a peroxide dianion and proposed a revised cycle [19]. X-ray structures of the bovine O and E forms add further detail [20], and the structures of the intermediates have been reviewed against time-resolved spectroscopic, structural and computational evidence [5]. The infrared data gave the same tyrosine pKa in kinetically resolved and equilibrium O [11] and no fingerprint difference between O and OH [13]. These results are not necessarily in conflict, because the species, the pH and the time after oxidation differ and OH relaxes on a time scale of seconds to tens of seconds [5,18], but they have not been reconciled.
The electronic state of the tyrosine. Magnetic circular dichroism and X-ray absorption data on the F intermediate were recently interpreted as an electron-delocalised copper–tyrosyl radical state that recurs in all four proton-pumping intermediates [21]. How this description relates to the 1308 cm−1 band, which was assigned to a tyrosinate in PR, F and O [10,11], has not been examined.
Time resolution. Rapid-scan FTIR resolved events slower than about 46 ms. The phase in which the PLS is loaded appears only as an unresolved step, and the evidence for it comes from non-pumping variants measured at 0 °C [14]. In the proton-pumping enzyme, electrometry places loading of the pump site at about 150 µs and release of the proton at about 2.6 ms after electron injection [22].
Spectral window and assignment. The time-resolved data cover only 1800–1000 cm−1. The assignment of the PLS bands to a propionate and to His-403 rests on band positions alone, without isotope labelling or mutation of the candidate groups [14]. The region above 3500 cm−1, where weakly hydrogen-bonded internal water molecules absorb [8,23], has not been studied in time-resolved mode.
Четыре ограничения описанных выше работ определяют то, что следует сделать далее.
Состояния O и OH. Серийная фемтосекундная кристаллография и резонансная рамановская спектроскопия бычьей CcO указывают, что в релаксированном состоянии O на геме a3 находится гидроксид, а на CuB — вода, как и в OH, но сшитый тирозин при этом нейтрален и протонирован, тогда как в OH его считают тирозинатом [18]. Криоэлектронно-микроскопическое исследование фермента P. denitrificans с разрешением до 1,9 Å, напротив, интерпретировало электронную плотность активного центра в состоянии O как дианион пероксида и предложило пересмотренный цикл [19]. Рентгеновские структуры бычьих форм O и E добавляют дополнительные детали [20], а структуры интермедиатов были сопоставлены с времяразрешёнными спектроскопическими, структурными и расчётными данными [5]. Инфракрасные данные дали одинаковое значение pKa тирозина для кинетически разрешённого и равновесного состояния O [11] и не выявили различий в «отпечатках пальцев» между O и OH [13]. Эти результаты не обязательно противоречат друг другу, поскольку различаются объекты, pH и время после окисления, а OH релаксирует за секунды–десятки секунд [5,18], однако согласовать их пока не удалось.
Электронное состояние тирозина. Данные магнитного кругового дихроизма и рентгеновского поглощения для интермедиата F недавно были интерпретированы как состояние медь–тирозильного радикала с делокализованным электроном, повторяющееся во всех четырёх перекачивающих протоны интермедиатах [21]. Как это описание соотносится с полосой 1308 см−1, отнесённой к тирозинату в PR, F и O [10,11], не рассматривалось.
Временно́е разрешение. Быстрое сканирование FTIR разрешало события медленнее примерно 46 мс. Фаза, в которой загружается ПЗС, проявляется лишь как неразрешённая стадия, а свидетельства в её пользу получены на не перекачивающих вариантах при 0 °C [14]. У перекачивающего протоны фермента электрометрия относит загрузку насосного сайта примерно к 150 мкс, а высвобождение протона — примерно к 2,6 мс после инжекции электрона [22].
Спектральное окно и отнесение полос. Времяразрешённые данные охватывают только диапазон 1800–1000 см−1. Отнесение полос ПЗС к пропионату и His-403 опирается лишь на положения полос, без изотопного мечения или мутагенеза групп-кандидатов [14]. Область выше 3500 см−1, где поглощают слабо связанные водородными связями внутренние молекулы воды [8,23], во времяразрешённом режиме не изучалась.
Жоғарыда жинақталған жұмыстардың төрт шектеуі одан әрі не істеу керектігін айқындайды.
O және OH күйлері. Сиыр CcO ферментінің сериялық фемтосекундтық кристаллографиясы мен резонанстық рамандық спектроскопиясы релаксацияланған O күйінде гем a3-те гидроксид, ал CuB-де су болатынын көрсетеді — OH-тегідей, бірақ тігілген тирозин бейтарап әрі протондалған, ал OH-та ол тирозинат деп саналады [18]. P. denitrificans ферментін 1,9 Å-ге дейінгі ажыратымдылықпен зерттеген криоэлектронды микроскопия жұмысы, керісінше, O күйіндегі белсенді орталықтың тығыздығын пероксид дианионы ретінде түсіндіріп, қайта қаралған цикл ұсынды [19]. Сиырдың O және E түрлерінің рентгендік құрылымдары қосымша егжей-тегжей береді [20], ал аралық өнімдердің құрылымдары уақытпен ажыратылған спектроскопиялық, құрылымдық және есептеу деректерімен салыстырылды [5]. Инфрақызыл деректер кинетикалық жолмен ажыратылған және тепе-теңдік O күйі үшін тирозиннің бірдей pKa мәнін берді [11] әрі O мен OH арасында «саусақ іздері» бойынша айырмашылық таппады [13]. Бұл нәтижелер міндетті түрде қайшы келмейді, себебі объектілер, pH және тотығудан кейінгі уақыт әртүрлі, ал OH секундтар мен ондаған секундтар ішінде релаксацияланады [5,18], дегенмен оларды әлі үйлестіру мүмкін болған жоқ.
Тирозиннің электрондық күйі. F аралық өніміне қатысты магниттік айналмалы дихроизм және рентгендік жұтылу деректері жақында барлық төрт протон айдайтын аралық өнімде қайталанатын, электроны делокализацияланған мыс–тирозил радикалы күйі ретінде түсіндірілді [21]. Бұл сипаттаманың PR, F және O күйлерінде тирозинатқа телінген 1308 см−1 жолағымен қалай байланысатыны [10,11] қарастырылған жоқ.
Уақыттық ажыратымдылық. Жылдам сканерлеу FTIR шамамен 46 мс-тан баяу оқиғаларды ажыратты. ПЖС жүктелетін фаза тек ажыратылмаған саты ретінде көрінеді, ал оның пайдасына деректер 0 °C-та өлшенген айдамайтын нұсқалардан алынған [14]. Протон айдайтын ферментте электрометрия сорғы сайтының жүктелуін электрон инжекциясынан кейінгі шамамен 150 мкс-қа, ал протонның босауын шамамен 2,6 мс-қа жатқызады [22].
Спектрлік терезе және жолақтарды телу. Уақытпен ажыратылған деректер тек 1800–1000 см−1 аралығын қамтиды. ПЖС жолақтарын пропионатқа және His-403-ке телу тек жолақтардың орналасуына сүйенеді, үміткер топтарды изотоптық таңбалау немесе мутагенездеу жүргізілмеген [14]. Сутектік байланысы әлсіз ішкі су молекулалары жұтатын 3500 см−1-ден жоғары аймақ [8,23] уақытпен ажыратылған режимде зерттелмеген.
4. Research Prospects 4. Перспективы исследований 4. Зерттеу перспективалары
4.1 Microsecond Infrared Spectroscopy of a Non-Repetitive Reaction 4.1 Микросекундная инфракрасная спектроскопия неповторяющейся реакции 4.1 Қайталанбайтын реакцияның микросекундтық инфрақызыл спектроскопиясы
Step-scan FTIR needs a reaction that can be repeated many hundreds to thousands of times under identical conditions. This is hard to achieve for the flow-flash oxygen reaction on a protein film, where every cycle requires re-reduction of the enzyme and rebinding of CO. Dual-comb spectrometers based on quantum cascade lasers (QCL) record spectra and kinetics from a single excitation with sub-microsecond to microsecond resolution [24,25]. A femtosecond mid-infrared facility has already detected protonation of a carboxyl group in bovine CcO under turnover within 1 ms [26], and time-resolved infrared work on the Cereibacter sphaeroides enzyme resolved deprotonation of the Glu-278 equivalent in 13 µs after transient reduction of heme a [27]. Applying these methods to the P. denitrificans flow-flash system would resolve PLS loading and release in the wild-type enzyme at the marker positions already identified: about 1700 cm−1 for the propionate, about 1100 cm−1 for histidine, 1308 cm−1 for Tyr-280 and about 1740 cm−1 for Glu-278. The spectral coverage of a single-shot measurement is narrow (55 cm−1 in [24]), so each marker region has to be recorded separately.
Пошаговое сканирование (step-scan) FTIR требует реакции, которую можно воспроизвести многие сотни и тысячи раз в идентичных условиях. Для flow-flash кислородной реакции на белковой плёнке этого трудно добиться: каждый цикл требует повторного восстановления фермента и повторного связывания CO. Двухгребенчатые (dual-comb) спектрометры на квантово-каскадных лазерах (QCL) регистрируют спектры и кинетику по одному возбуждению с субмикросекундным и микросекундным разрешением [24,25]. Фемтосекундная среднеинфракрасная установка уже зафиксировала протонирование карбоксильной группы в бычьей CcO в условиях оборота за время менее 1 мс [26], а времяразрешённые инфракрасные работы на ферменте Cereibacter sphaeroides разрешили депротонирование аналога Glu-278 за 13 мкс после кратковременного восстановления гема a [27]. Применение этих методов к flow-flash системе P. denitrificans позволило бы разрешить загрузку и разгрузку ПЗС у фермента дикого типа на уже выявленных маркерных позициях: около 1700 см−1 для пропионата, около 1100 см−1 для гистидина, 1308 см−1 для Tyr-280 и около 1740 см−1 для Glu-278. Спектральный охват однократного измерения узок (55 см−1 в [24]), поэтому каждую маркерную область приходится регистрировать отдельно.
Қадамдық сканерлеу (step-scan) FTIR бірдей жағдайда жүздеген, тіпті мыңдаған рет қайталауға болатын реакцияны талап етеді. Ақуыз қабықшасындағы flow-flash оттегі реакциясы үшін мұны жүзеге асыру қиын: әрбір цикл ферментті қайта тотықсыздандыруды және CO-ны қайта байланыстыруды қажет етеді. Кванттық каскадты лазерлерге (QCL) негізделген қос тарақты (dual-comb) спектрометрлер спектрлер мен кинетиканы бір қозудан субмикросекундтық және микросекундтық ажыратымдылықпен тіркейді [24,25]. Фемтосекундтық орта инфрақызыл қондырғы сиыр CcO ферментінде айналым жағдайында карбоксил тобының протондануын 1 мс ішінде тіркеді [26], ал Cereibacter sphaeroides ферментіндегі уақытпен ажыратылған инфрақызыл жұмыстар гем a-ның қысқа мерзімді тотықсыздануынан кейін Glu-278 баламасының депротондануын 13 мкс ішінде ажыратты [27]. Бұл әдістерді P. denitrificans flow-flash жүйесіне қолдану жабайы типті ферменттегі ПЖС-тің жүктелуі мен босауын бұрыннан анықталған маркерлік позицияларда ажыратуға мүмкіндік берер еді: пропионат үшін шамамен 1700 см−1, гистидин үшін шамамен 1100 см−1, Tyr-280 үшін 1308 см−1 және Glu-278 үшін шамамен 1740 см−1. Бір реттік өлшеудің спектрлік қамтуы тар ([24] жұмысында 55 см−1), сондықтан әрбір маркерлік аймақты бөлек тіркеуге тура келеді.
4.2 Water and the High-Frequency Region 4.2 Вода и высокочастотная область 4.2 Су және жоғары жиілікті аймақ
Extending time-resolved measurements to 4000–2000 cm−1 would test two specific proposals. The first is that the PLS is a protonated water cluster [16]; in bacteriorhodopsin such a cluster gives a broad continuum absorbance rather than sharp bands [28]. The second is that O and OH differ in water molecules at or near the BNC [13,18]. Equilibrium spectra of bovine CcO already resolve several weakly hydrogen-bonded water molecules that respond to redox and ligand changes [23], and D2O and H218O exchange, as used in [8], provides the assignment.
Расширение времяразрешённых измерений до диапазона 4000–2000 см−1 позволило бы проверить два конкретных предположения. Первое: ПЗС представляет собой протонированный кластер воды [16]; у бактериородопсина такой кластер даёт широкое континуумное поглощение, а не узкие полосы [28]. Второе: O и OH различаются молекулами воды в БЯЦ или вблизи него [13,18]. Равновесные спектры бычьей CcO уже разрешают несколько слабо связанных водородными связями молекул воды, реагирующих на редокс- и лигандные изменения [23], а обмен на D2O и H218O, применённый в [8], обеспечивает их отнесение.
Уақытпен ажыратылған өлшеулерді 4000–2000 см−1 аралығына дейін кеңейту екі нақты болжамды тексеруге мүмкіндік берер еді. Біріншісі: ПЖС — протондалған су кластері [16]; бактериородопсинде мұндай кластер тар жолақтар емес, кең континуум жұтылуын береді [28]. Екіншісі: O мен OH ЕЯО-дағы немесе оған жақын су молекулаларымен ерекшеленеді [13,18]. Сиыр CcO ферментінің тепе-теңдік спектрлері редокс- және лиганд өзгерістеріне жауап беретін, сутектік байланысы әлсіз бірнеше су молекуласын ажыратып отыр [23], ал [8] жұмысында қолданылған D2O және H218O алмасуы оларды телуді қамтамасыз етеді.
4.3 Assignments That Do Not Rest on Band Position 4.3 Отнесения, не опирающиеся на положение полосы 4.3 Жолақ орналасуына сүйенбейтін телулер
The PLS assignment needs variants at His-403 and Asp-399 and specific isotope labelling of histidine and of the heme propionates. Computation is the second route. Quantum chemical and QM/MM models now give electric fields and proton-transfer energetics around the PLS [29], and the stretching frequency of CO bound to heme a3 has been used as a vibrational Stark probe of field changes at the BNC [30]. Difference spectra calculated for specific protonation patterns of the propionate–histidine–water cluster could be compared directly with the double-difference spectra in [14].
Для отнесения полос ПЗС нужны варианты по His-403 и Asp-399, а также специфическое изотопное мечение гистидина и пропионатов гема. Второй путь — расчёты. Квантово-химические и QM/MM-модели теперь дают электрические поля и энергетику переноса протона в окрестности ПЗС [29], а частота валентного колебания CO, связанного с гемом a3, использовалась как колебательный штарковский зонд изменений поля в БЯЦ [30]. Разностные спектры, рассчитанные для конкретных схем протонирования кластера пропионат–гистидин–вода, можно было бы напрямую сопоставить со спектрами двойной разности из [14].
ПЖС жолақтарын телу үшін His-403 және Asp-399 бойынша нұсқалар, сондай-ақ гистидин мен гем пропионаттарын арнайы изотоптық таңбалау қажет. Екінші жол — есептеулер. Кванттық-химиялық және QM/MM модельдері енді ПЖС маңындағы электр өрістері мен протон тасымалының энергетикасын береді [29], ал гем a3-пен байланысқан CO-ның валенттік тербеліс жиілігі ЕЯО-дағы өріс өзгерістерінің тербелмелі Штарк зонды ретінде пайдаланылды [30]. Пропионат–гистидин–су кластерінің нақты протондану сұлбалары үшін есептелген айырымдық спектрлерді [14] жұмысындағы қос айырым спектрлерімен тікелей салыстыруға болар еді.
4.4 Connecting Infrared Data to Structures of Intermediates 4.4 Связь инфракрасных данных со структурами интермедиатов 4.4 Инфрақызыл деректерді аралық өнімдердің құрылымдарымен байланыстыру
The disagreement over O and OH (Section 3) can be tested with a simple experiment: follow the 1308 cm−1 tyrosinate band and the water region from milliseconds to minutes after oxidation, at several pH values, in the bacterial enzyme and in a mitochondrial one. The yeast enzyme is suited to this because it can be mutated and its redox FTIR spectra have been compared with those of the bovine and P. denitrificans enzymes [3,31]. Time-resolved crystallography has captured an oxygen intermediate of bovine CcO [32], photolabile caged-oxygen compounds are being developed to start the reaction in microcrystals [33], and time-resolved infrared microspectroscopy of protein microcrystals has been established [34]. Oxidation in the dark by controlled gas exchange removes the need for CO photolysis [35].
Расхождение по поводу O и OH (раздел 3) можно проверить простым экспериментом: проследить тирозинатную полосу 1308 см−1 и область воды в интервале от миллисекунд до минут после окисления, при нескольких значениях pH, на бактериальном и на митохондриальном ферменте. Дрожжевой фермент подходит для этого, поскольку допускает мутагенез, а его редокс-FTIR-спектры уже сопоставлялись со спектрами бычьего фермента и фермента P. denitrificans [3,31]. Времяразрешённая кристаллография зафиксировала кислородный интермедиат бычьей CcO [32]; разрабатываются фотолабильные «клеточные» (caged) соединения кислорода для запуска реакции в микрокристаллах [33]; отработана времяразрешённая инфракрасная микроспектроскопия белковых микрокристаллов [34]. Окисление в темноте путём контролируемого газообмена снимает необходимость фотолиза CO [35].
O мен OH жөніндегі алшақтықты (3-бөлім) қарапайым тәжірибемен тексеруге болады: 1308 см−1 тирозинат жолағы мен су аймағын тотығудан кейінгі миллисекундтардан минуттарға дейінгі аралықта, бірнеше pH мәнінде, бактериялық және митохондриялық ферменттерде қадағалау. Ашытқы ферменті бұған қолайлы, себебі ол мутагенезге көнеді әрі оның редокс-FTIR спектрлері сиыр және P. denitrificans ферменттерінің спектрлерімен салыстырылған [3,31]. Уақытпен ажыратылған кристаллография сиыр CcO ферментінің оттегі аралық өнімін тіркеді [32]; микрокристалдарда реакцияны іске қосу үшін фотолабильді «торланған» (caged) оттегі қосылыстары әзірленуде [33]; ақуыз микрокристалдарының уақытпен ажыратылған инфрақызыл микроспектроскопиясы қалыптасты [34]. Бақыланатын газ алмасу арқылы қараңғыда тотықтыру CO фотолизінің қажеттілігін жояды [35].
4.5 Membrane Potential and Native-Like Environments 4.5 Мембранный потенциал и нативноподобное окружение 4.5 Мембраналық потенциал және нативтіге жақын орта
All the infrared work summarised here used detergent-depleted films without a membrane potential. The 2008 analysis predicted that a potential of 180 mV would lower the pKa of Tyr-280 by about two units [11]; this has not been tested. Lipid nanodiscs provide a defined bilayer that is compatible with FTIR difference spectroscopy of CcO [36] and are a first step towards measurements on energised membranes.
Все обобщённые здесь инфракрасные работы выполнены на обеднённых детергентом плёнках в отсутствие мембранного потенциала. Анализ 2008 года предсказывал, что потенциал 180 мВ понизит pKa Tyr-280 примерно на две единицы [11]; это предсказание не проверялось. Липидные нанодиски обеспечивают определённый бислой, совместимый с разностной FTIR-спектроскопией CcO [36], и представляют собой первый шаг к измерениям на энергизованных мембранах.
Мұнда жинақталған барлық инфрақызыл жұмыстар детергенті азайтылған қабықшаларда, мембраналық потенциалсыз орындалған. 2008 жылғы талдау 180 мВ потенциал Tyr-280-дің pKa мәнін шамамен екі бірлікке төмендетеді деп болжаған [11]; бұл болжам тексерілген жоқ. Липидті нанодискілер CcO-ның айырымдық FTIR-спектроскопиясымен үйлесетін айқын қос қабат қамтамасыз етеді [36] және энергияланған мембраналардағы өлшеулерге қарай жасалған алғашқы қадам болып табылады.
Table 2.Таблица 2.2-кесте. Open questions and proposed infrared experiments. Нерешённые вопросы и предлагаемые инфракрасные эксперименты. Шешілмеген мәселелер және ұсынылатын инфрақызыл тәжірибелер.
| Open questionНерешённый вопросШешілмеген мәселе | Proposed experimentПредлагаемый экспериментҰсынылатын тәжірибе | Infrared readoutИнфракрасный откликИнфрақызыл көрсеткіш |
|---|---|---|
| When is the PLS loaded and released in the wild-type enzyme?Когда ПЗС загружается и разгружается у фермента дикого типа?Жабайы типті ферментте ПЖС қашан жүктеліп, қашан босайды? | Single-shot QCL dual-comb spectroscopy of the flow-flash reaction, microseconds to milliseconds, one marker region at a timeОднократная (single-shot) двухгребенчатая QCL-спектроскопия flow-flash реакции, от микросекунд до миллисекунд, по одной маркерной области за измерениеFlow-flash реакциясының бір реттік (single-shot) қос тарақты QCL-спектроскопиясы, микросекундтардан миллисекундтарға дейін, бір өлшеуге бір маркерлік аймақ | About 1700 cm−1 (propionate); about 1100 cm−1 (histidine); 1308 cm−1 (Tyr-280); about 1740 cm−1 (Glu-278)Около 1700 см−1 (пропионат); около 1100 см−1 (гистидин); 1308 см−1 (Tyr-280); около 1740 см−1 (Glu-278)Шамамен 1700 см−1 (пропионат); шамамен 1100 см−1 (гистидин); 1308 см−1 (Tyr-280); шамамен 1740 см−1 (Glu-278) |
| Does a protonated water cluster contribute to the PLS?Вносит ли вклад в ПЗС протонированный кластер воды?ПЖС-ке протондалған су кластері үлес қоса ма? | Time-resolved spectra at 4000–2000 cm−1 with D2O and H218O exchangeВремяразрешённые спектры в диапазоне 4000–2000 см−1 с обменом на D2O и H218OD2O және H218O алмасуымен 4000–2000 см−1 аралығындағы уақытпен ажыратылған спектрлер | Continuum absorbance; O–H stretch of weakly hydrogen-bonded water (3560–3800 cm−1)Континуумное поглощение; валентное колебание O–H слабо связанной водородными связями воды (3560–3800 см−1)Континуум жұтылуы; сутектік байланысы әлсіз судың O–H валенттік тербелісі (3560–3800 см−1) |
| Which groups give the PLS bands?Какие группы дают полосы ПЗС?ПЖС жолақтарын қандай топтар береді? | His-403 and Asp-399 variants; isotope-labelled histidine and heme propionates; QM/MM-calculated difference spectraВарианты по His-403 и Asp-399; изотопно меченные гистидин и пропионаты гема; разностные спектры, рассчитанные методом QM/MMHis-403 және Asp-399 бойынша нұсқалар; изотоппен таңбаланған гистидин және гем пропионаттары; QM/MM әдісімен есептелген айырымдық спектрлер | Shift or loss of bands in the double-difference spectra of [14]Сдвиг или исчезновение полос в спектрах двойной разности из [14][14] жұмысындағы қос айырым спектрлерінде жолақтардың ығысуы немесе жоғалуы |
| How do O and OH differ?Чем различаются O и OH?O мен OH немен ерекшеленеді? | Time (milliseconds to minutes) and pH series after oxidation; bacterial and mitochondrial enzymesВременны́е (от миллисекунд до минут) и pH-серии после окисления; бактериальный и митохондриальный ферментыТотығудан кейінгі уақыттық (миллисекундтан минутқа дейін) және pH сериялары; бактериялық және митохондриялық ферменттер | 1308 cm−1 (Tyr-280); water region1308 см−1 (Tyr-280); область воды1308 см−1 (Tyr-280); су аймағы |
| How does membrane potential change the protonation of Tyr-280?Как мембранный потенциал меняет протонирование Tyr-280?Мембраналық потенциал Tyr-280-дің протондануын қалай өзгертеді? | Enzyme in nanodiscs or proteoliposomes under an imposed potentialФермент в нанодисках или протеолипосомах при наложенном потенциалеБерілген потенциал жағдайындағы нанодискілердегі немесе протеолипосомалардағы фермент | 1308 cm−1 as a function of potential and pH1308 см−1 как функция потенциала и pHПотенциал мен pH функциясы ретіндегі 1308 см−1 |
5. Conclusions 5. Заключение 5. Қорытынды
The FTIR studies of P. denitrificans CcO assigned protonation changes of Tyr-280 and Glu-278 to individual steps of the catalytic cycle and gave time-resolved infrared data on the PLS. Their limits were set by the technology of the time: millisecond resolution, a single spectral window and assignments based on band position. Single-shot microsecond infrared methods, damage-free structures of intermediates and quantitative calculations now address each of these limits. The most direct next experiments are microsecond infrared kinetics of the wild-type oxygen reaction, time-resolved spectra in the water region, and a time and pH series of the tyrosine band across the OH→O relaxation.
FTIR-исследования CcO из P. denitrificans отнесли изменения протонирования Tyr-280 и Glu-278 к отдельным стадиям каталитического цикла и дали времяразрешённые инфракрасные данные о ПЗС. Их пределы задавались технологиями того времени: миллисекундное разрешение, единственное спектральное окно и отнесения, опирающиеся на положение полос. Однократные микросекундные инфракрасные методы, структуры интермедиатов без радиационных повреждений и количественные расчёты сегодня снимают каждое из этих ограничений. Наиболее прямые следующие эксперименты — микросекундная инфракрасная кинетика кислородной реакции фермента дикого типа, времяразрешённые спектры в области воды и временна́я и pH-серия тирозиновой полосы на протяжении релаксации OH→O.
P. denitrificans CcO ферментін FTIR әдісімен зерттеу жұмыстары Tyr-280 мен Glu-278-дің протондану өзгерістерін каталитикалық циклдің жекелеген сатыларына телді және ПЖС туралы уақытпен ажыратылған инфрақызыл деректер берді. Олардың шектеулерін сол кездегі технологиялар айқындады: миллисекундтық ажыратымдылық, жалғыз спектрлік терезе және жолақ орналасуына сүйенген телулер. Бір реттік микросекундтық инфрақызыл әдістер, аралық өнімдердің зақымсыз құрылымдары және сандық есептеулер бүгінде осы шектеулердің әрқайсысын еңсереді. Ең тікелей келесі тәжірибелер — жабайы типті ферменттің оттегі реакциясының микросекундтық инфрақызыл кинетикасы, су аймағындағы уақытпен ажыратылған спектрлер, сондай-ақ OH→O релаксациясы бойындағы тирозин жолағының уақыттық және pH сериясы.
AbbreviationsСокращенияҚысқартулар
ATR, attenuated total reflection; BNC, binuclear centre; CcO, cytochrome c oxidase; FTIR, Fourier transform infrared; PLS, proton-loading site; QCL, quantum cascade laser; QM/MM, quantum mechanics/molecular mechanics.
ATR — нарушенное полное внутреннее отражение; БЯЦ — биядерный центр; CcO — цитохром c-оксидаза; FTIR — инфракрасная спектроскопия с фурье-преобразованием; ПЗС — протон-загрузочный сайт; QCL — квантово-каскадный лазер; QM/MM — квантовая механика/молекулярная механика.
ATR — толық ішкі шағылысудың бұзылуы; ЕЯО — екіядролық орталық; CcO — цитохром c-оксидаза; FTIR — Фурье түрлендіруі бар инфрақызыл спектроскопия; ПЖС — протон жүктеу сайты; QCL — кванттық каскадты лазер; QM/MM — кванттық механика/молекулалық механика.
Data AvailabilityДоступность данныхДеректердің қолжетімділігі
No new data were created or analysed in this work.
Новые данные в этой работе не создавались и не анализировались.
Бұл жұмыста жаңа деректер жасалған да, талданған да жоқ.
FundingФинансированиеҚаржыландыру
EG was supported by the Center of International Mobility (CIMO) and the Informational and Structural Biology (ISB) Graduate School. The work was supported by the Sigrid Jusélius Foundation, Biocentrum Helsinki and the Academy of Finland (project numbers 200726, 44895, and 115108).
Е. Г. получала поддержку Центра международной мобильности (CIMO) и аспирантской школы информационной и структурной биологии (ISB). Работа выполнена при поддержке Фонда Сигрид Юселиус, Biocentrum Helsinki и Академии Финляндии (проекты № 200726, 44895 и 115108).
Е. Г. Халықаралық мобильділік орталығының (CIMO) және Ақпараттық және құрылымдық биология (ISB) аспирантура мектебінің қолдауына ие болды. Жұмыс Сигрид Юселиус қорының, Biocentrum Helsinki және Финляндия Академиясының қолдауымен орындалды (№ 200726, 44895 және 115108 жобалар).
AcknowledgmentsБлагодарностиАлғыс сөздер
We warmly thank Dr. Nikolai Belevich for excellent technical assistance and Dr. Timur Nikitin for critical reading of the manuscript.
Авторы сердечно благодарят д-ра Николая Белевича за превосходную техническую помощь и д-ра Тимура Никитина за критическое прочтение рукописи.
Авторлар тамаша техникалық көмегі үшін д-р Николай Белевичке және қолжазбаны сын көзбен оқығаны үшін д-р Тимур Никитинге шын жүректен алғыс білдіреді.
Author ContributionsВклад авторовАвторлардың үлесі
Conceptualization, Investigation, and Writing: E.A.G.
Концепция, проведение исследования и написание текста: E.A.G.
Тұжырымдама, зерттеу және мәтінді жазу: E.A.G.
EthicsЭтикаЭтика
Not applicable.
Неприменимо.
Қолданылмайды.
Competing InterestsКонфликт интересовМүдделер қақтығысы
The authors declare that the research was conducted in the absence of any commercial or financial relationships that could be construed as a potential conflict of interest.
Авторы заявляют, что исследование проводилось в отсутствие каких-либо коммерческих или финансовых отношений, которые могли бы быть истолкованы как потенциальный конфликт интересов.
Авторлар зерттеудің ықтимал мүдделер қақтығысы ретінде түсіндірілуі мүмкін кез келген коммерциялық немесе қаржылық қатынастарсыз жүргізілгенін мәлімдейді.
ReferencesЛитератураӘдебиеттер
- Wikström M, Krab K, Sharma V (2018) Oxygen activation and energy conservation by cytochrome c oxidase. Chemical Reviews 118 (5):2469-2490. DOI: 10.1021/acs.chemrev.7b00664
- Kaila VRI, Verkhovsky MI, Wikström M (2010) Proton-coupled electron transfer in cytochrome oxidase. Chemical Reviews 110 (12):7062-7081. DOI: 10.1021/cr1002003
- Maréchal A, Xu JY, Genko N, Hartley AM, Haraux F, Meunier B, Rich PR (2020) A common coupling mechanism for A-type heme-copper oxidases from bacteria to mitochondria. Proceedings of the National Academy of Sciences USA 117 (16):9349-9355. DOI: 10.1073/pnas.2001572117
- Shimada A, Tsukihara T, Yoshikawa S (2023) Recent progress in experimental studies on the catalytic mechanism of cytochrome c oxidase. Frontiers in Chemistry 11:1108190. DOI: 10.3389/fchem.2023.1108190
- Wikström M, Gennis RB, Rich PR (2023) Structures of the intermediates in the catalytic cycle of mitochondrial cytochrome c oxidase. Biochimica et Biophysica Acta – Bioenergetics 1864 (2):148933. DOI: 10.1016/j.bbabio.2022.148933
- Lorenz-Fonfria VA (2020) Infrared difference spectroscopy of proteins: from bands to bonds. Chemical Reviews 120 (7):3466-3576. DOI: 10.1021/acs.chemrev.9b00449
- Gorbikova EA, Vuorilehto K, Wikström M, Verkhovsky MI (2006) Redox titration of all electron carriers of cytochrome c oxidase by Fourier transform infrared spectroscopy. Biochemistry 45 (17):5641-5649. DOI: 10.1021/bi060257v
- Gorbikova EA, Belevich NP, Wikström M, Verkhovsky MI (2007) Protolytic reactions on reduction of cytochrome c oxidase studied by ATR-FTIR spectroscopy. Biochemistry 46 (13):4177-4183. DOI: 10.1021/bi602523a
- Gorbikova EA, Belevich NP, Wikström M, Verkhovsky MI (2007) Time-resolved ATR-FTIR spectroscopy of the oxygen reaction in the D124N mutant of cytochrome c oxidase from Paracoccus denitrificans. Biochemistry 46 (45):13141-13148. DOI: 10.1021/bi701614w
- Gorbikova EA, Belevich I, Wikström M, Verkhovsky MI (2008) The proton donor for O–O bond scission by cytochrome c oxidase. Proceedings of the National Academy of Sciences USA 105 (31):10733-10737. DOI: 10.1073/pnas.0802512105
- Gorbikova EA, Wikström M, Verkhovsky MI (2008) The protonation state of the cross-linked tyrosine during the catalytic cycle of cytochrome c oxidase. Journal of Biological Chemistry 283 (50):34907-34912. DOI: 10.1074/jbc.M803511200
- Belevich I, Gorbikova E, Belevich NP, Rauhamäki V, Wikström M, Verkhovsky MI (2010) Initiation of the proton pump of cytochrome c oxidase. Proceedings of the National Academy of Sciences USA 107 (43):18469-18474. DOI: 10.1073/pnas.1010974107
- Gorbikova E, Kalendar R (2020) Comparison between O and OH intermediates of cytochrome c oxidase studied by FTIR spectroscopy. Frontiers in Chemistry 8:387. DOI: 10.3389/fchem.2020.00387
- Gorbikova E, Samsonov SA, Kalendar R (2020) Probing the proton-loading site of cytochrome c oxidase using time-resolved Fourier transform infrared spectroscopy. Molecules 25 (15):3393. DOI: 10.3390/molecules25153393
- Lu J, Gunner MR (2014) Characterizing the proton loading site in cytochrome c oxidase. Proceedings of the National Academy of Sciences USA 111 (34):12414-12419. DOI: 10.1073/pnas.1407187111
- Supekar S, Gamiz-Hernandez AP, Kaila VRI (2016) A protonated water cluster as a transient proton-loading site in cytochrome c oxidase. Angewandte Chemie International Edition 55 (39):11940-11944. DOI: 10.1002/anie.201603606
- Bloch D, Belevich I, Jasaitis A, Ribacka C, Puustinen A, Verkhovsky MI, Wikström M (2004) The catalytic cycle of cytochrome c oxidase is not the sum of its two halves. Proceedings of the National Academy of Sciences USA 101 (2):529-533. DOI: 10.1073/pnas.0306036101
- Ishigami I, Sierra RG, Su Z, Peck A, Wang C, Poitevin F, Lisova S, Hayes B, Moss FR, Boutet S, et al. (2023) Structural insights into functional properties of the oxidized form of cytochrome c oxidase. Nature Communications 14 (1):5752. DOI: 10.1038/s41467-023-41533-x
- Kolbe F, Safarian S, Piórek Ż, Welsch S, Müller H, Michel H (2021) Cryo-EM structures of intermediates suggest an alternative catalytic reaction cycle for cytochrome c oxidase. Nature Communications 12 (1):6903. DOI: 10.1038/s41467-021-27174-y
- Shimada A, Hara F, Shinzawa-Itoh K, Kanehisa N, Yamashita E, Muramoto K, Tsukihara T, Yoshikawa S (2021) Critical roles of the CuB site in efficient proton pumping as revealed by crystal structures of mammalian cytochrome c oxidase catalytic intermediates. Journal of Biological Chemistry 297 (5):100967. DOI: 10.1016/j.jbc.2021.100967
- Jose A, Braun A, Hong S, Gennis RB, Solomon EI (2026) Spectroscopic elucidation of an electron-delocalized copper-tyrosine state in heme-copper oxidases reveals its role in proton pumping. Proceedings of the National Academy of Sciences USA 123 (2):e2602110123. DOI: 10.1073/pnas.2602110123
- Belevich I, Bloch DA, Belevich N, Wikström M, Verkhovsky MI (2007) Exploring the proton pump mechanism of cytochrome c oxidase in real time. Proceedings of the National Academy of Sciences USA 104 (8):2685-2690. DOI: 10.1073/pnas.0608794104
- Maréchal A, Rich PR (2011) Water molecule reorganization in cytochrome c oxidase revealed by FTIR spectroscopy. Proceedings of the National Academy of Sciences USA 108 (21):8634-8638. DOI: 10.1073/pnas.1019419108
- Klocke JL, Mangold M, Allmendinger P, Hugi A, Geiser M, Jouy P, Faist J, Kottke T (2018) Single-shot sub-microsecond mid-infrared spectroscopy on protein reactions with quantum cascade laser frequency combs. Analytical Chemistry 90 (17):10494-10500. DOI: 10.1021/acs.analchem.8b02531
- Norahan MJ, Horvath R, Woitzik N, Jouy P, Eigenmann F, Gerwert K, Kötting C (2021) Microsecond-resolved infrared spectroscopy on nonrepetitive protein reactions by applying caged compounds and quantum cascade laser frequency combs. Analytical Chemistry 93 (19):6779-6783. DOI: 10.1021/acs.analchem.1c00666
- Li C, Nishiguchi T, Shinzawa-Itoh K, Yoshikawa S, Ogura T, Nakashima S (2018) Performance of a time-resolved IR facility for assessment of protonation states and polarity changes in carboxyl groups in a large membrane protein, mammalian cytochrome c oxidase, under turnover conditions in a sub-millisecond time resolution. Biochimica et Biophysica Acta – Bioenergetics 1859 (10):1045-1050. DOI: 10.1016/j.bbabio.2018.05.015
- Baserga F, Langner P, Schubert L, Storm JP, Schlesinger R, Heberle J (2025) Proton-coupled electron transfer in cytochrome c oxidase: heme a controls the protonation dynamics of E286. ChemPhysChem 26:e202500539. DOI: 10.1002/cphc.202500539
- Garczarek F, Gerwert K (2006) Functional waters in intraprotein proton transfer monitored by FTIR difference spectroscopy. Nature 439 (7072):109-112. DOI: 10.1038/nature04231
- Saura P, Riepl D, Frey DM, Wikström M, Kaila VRI (2022) Electric fields control water-gated proton transfer in cytochrome c oxidase. Proceedings of the National Academy of Sciences USA 119 (38):e2207761119. DOI: 10.1073/pnas.2207761119
- Baserga F, Dragelj J, Kozuch J, Mohrmann H, Knapp EW, Stripp ST, Heberle J (2021) Quantification of local electric field changes at the active site of cytochrome c oxidase by Fourier transform infrared spectroelectrochemical titrations. Frontiers in Chemistry 9:669452. DOI: 10.3389/fchem.2021.669452
- Maréchal A, Hartley AM, Warelow TP, Meunier B, Rich PR (2018) Comparison of redox and ligand binding behaviour of yeast and bovine cytochrome c oxidases using FTIR spectroscopy. Biochimica et Biophysica Acta – Bioenergetics 1859 (9):705-711. DOI: 10.1016/j.bbabio.2018.05.018
- Ishigami I, Lewis-Ballester A, Echelmeier A, Brehm G, Zatsepin NA, Grant TD, Coe JD, Lisova S, Nelson G, Zhang S, et al. (2019) Snapshot of an oxygen intermediate in the catalytic reaction of cytochrome c oxidase. Proceedings of the National Academy of Sciences USA 116 (9):3572-3577. DOI: 10.1073/pnas.1814526116
- Sandelin E, Johannesson J, Wendt O, Brändén G, Neutze R, Wallentin CJ (2024) Characterization and evaluation of photolabile (µ-peroxo)(µ-hydroxo)bis[bis(bipyridyl)cobalt caged oxygen compounds to facilitate time-resolved crystallographic studies of cytochrome c oxidase. Photochemical & Photobiological Sciences 23 (5):839-851. DOI: 10.1007/s43630-024-00558-x
- Sato W, Yamada D, Kubo M (2024) Time-resolved IR spectroscopy for monitoring protein dynamics in microcrystals. Methods in Enzymology 709:161-176. DOI: 10.1016/bs.mie.2024.10.006
- Baserga F, Storm J, Schlesinger R, Heberle J, Stripp ST (2023) The catalytic reaction of cytochrome c oxidase probed by in situ gas titrations and FTIR difference spectroscopy. Biochimica et Biophysica Acta – Bioenergetics 1864 (4):149000. DOI: 10.1016/j.bbabio.2023.149000
- Baserga F, Vorkas A, Crea F, Schubert L, Chen JL, Redlich A, La Greca M, Storm J, Oldemeyer S, Hoffmann K, et al. (2022) Membrane protein activity induces specific molecular changes in nanodiscs monitored by FTIR difference spectroscopy. Frontiers in Molecular Biosciences 9:915328. DOI: 10.3389/fmolb.2022.915328