Advances and Future Perspectives of Targeted Mutagenesis in Barley Достижения и будущие перспективы таргетного мутагенеза у ячменя Арпадағы нысаналы мутагенездің жетістіктері мен болашақ перспективалары

AbstractАннотацияАңдатпа
Targeted mutagenesis technologies, commonly referred to as “genome editing”, have rapidly become transformative tools in crop breeding. Modern crop production faces mounting challenges such as climate change, emerging diseases, and shifting quality demands, creating an urgent need for breeding approaches that enable more precise genetic improvement within shorter timeframes. Targeted mutagenesis capable of introducing mutations accurately and efficiently began with the development of meganucleases and subsequently evolved through ZFNs, TALENs, and CRISPR/Cas systems. Recent technological advances, including multiplex editing and DNA-free genome editing, have made direct modification of elite cultivars increasingly feasible, helping to overcome long-standing barriers associated with genotype dependency and the complexity of polyploid genomes. Targeted mutagenesis has now been applied to a wide range of breeding targets, including disease resistance, tolerance to abiotic stresses, yield-related traits, and quality traits. Moreover, machine learning and AI are beginning to support target selection and phenotype prediction, ushering in an era in which genome editing can be integrated into breeding programs more rationally and efficiently. These scientific developments coincide with regulatory shifts in many countries toward easing restrictions on new genomic techniques (NGTs), particularly by treating SDN-1 genome-edited crops equivalently to those produced through conventional breeding. Such changes are expected to accelerate field trials, commercialization, and international collaboration. Nevertheless, several challenges remain, including bottlenecks in transformation efficiency, off-target assessment, the control of complex traits, societal acceptance, and unresolved regulatory details. Even so, genome editing is poised to become a central technology in next-generation cereal breeding, enabling the development of cultivars with greater resilience, productivity, and adaptability to diverse industrial needs.
Технологии таргетного мутагенеза, обычно обозначаемые термином «редактирование генома», стремительно превратились в преобразующие инструменты селекции сельскохозяйственных культур. Современное растениеводство сталкивается с нарастающими вызовами, такими как изменение климата, появление новых болезней и меняющиеся требования к качеству, что порождает настоятельную потребность в селекционных подходах, обеспечивающих более точное генетическое улучшение в более сжатые сроки. Таргетный мутагенез, способный вносить мутации точно и эффективно, начался с разработки мегануклеаз и в дальнейшем развивался через ZFN, TALEN и системы CRISPR/Cas. Недавние технологические достижения, включая мультиплексное редактирование и ДНК-свободное редактирование генома, сделали прямую модификацию элитных сортов всё более осуществимой, помогая преодолеть давние барьеры, связанные с генотипической зависимостью и сложностью полиплоидных геномов. К настоящему времени таргетный мутагенез применён к широкому кругу селекционных задач, включая устойчивость к болезням, толерантность к абиотическим стрессам, признаки, связанные с урожайностью, и признаки качества. Более того, машинное обучение и искусственный интеллект (ИИ) начинают способствовать выбору мишеней и предсказанию фенотипа, открывая эпоху, в которой редактирование генома может быть интегрировано в селекционные программы более рационально и эффективно. Эти научные достижения совпадают с нормативными сдвигами во многих странах в направлении смягчения ограничений на новые геномные технологии (НГТ), в частности за счёт приравнивания отредактированных по геному культур категории SDN-1 к культурам, полученным методами традиционной селекции. Ожидается, что такие изменения ускорят полевые испытания, коммерциализацию и международное сотрудничество. Тем не менее сохраняется ряд проблем, включая узкие места в эффективности трансформации, оценку нецелевых (off-target) эффектов, контроль сложных признаков, общественное принятие и неурегулированные детали нормативной базы. Несмотря на это, редактирование генома готово стать центральной технологией селекции зерновых культур следующего поколения, обеспечивая создание сортов с более высокой устойчивостью, продуктивностью и адаптируемостью к разнообразным потребностям промышленности.
Әдетте «геномды редакциялау» деп аталатын нысаналы мутагенез технологиялары дақыл селекциясында түбегейлі өзгеріс әкелетін құралдарға тез арада айналды. Қазіргі дақыл өндірісі климаттың өзгеруі, жаңадан пайда болып жатқан аурулар және сапаға қойылатын талаптардың өзгеруі сияқты күшейе түскен сын-қатерлерге тап болып отыр; бұл қысқа мерзім ішінде неғұрлым дәл генетикалық жақсартуға мүмкіндік беретін селекциялық тәсілдерге деген шұғыл қажеттілікті туғызады. Мутацияларды дәл әрі тиімді енгізуге қабілетті нысаналы мутагенез мегануклеазаларды жасаудан басталып, кейіннен ZFN, TALEN және CRISPR/Cas жүйелері арқылы дамыды. Мультиплексті редакциялау мен ДНҚ-сыз геномды редакциялауды қоса алғанда, соңғы технологиялық жетістіктер элиталық сорттарды тікелей түрлендіруді барған сайын жүзеге асыруға болатын етіп, генотипке тәуелділікке және полиплоидты геномдардың күрделілігіне байланысты ұзақ уақыт бойы сақталып келген кедергілерді еңсеруге септігін тигізді. Бүгінде нысаналы мутагенез ауруларға төзімділікті, абиотикалық стрестерге төзімділікті, өнімділікке қатысты белгілерді және сапа белгілерін қоса алғанда, селекциялық нысаналардың кең ауқымына қолданылып отыр. Сонымен қатар машиналық оқыту мен жасанды интеллект (ЖИ) нысананы таңдауға және фенотипті болжауға қолдау көрсете бастады, бұл геномды редакциялауды селекциялық бағдарламаларға неғұрлым ұтымды әрі тиімді түрде ықпалдастыруға мүмкіндік беретін дәуірдің басталуын білдіреді. Бұл ғылыми жетістіктер көптеген елдерде жаңа геномдық технологияларға (ЖГТ) қатысты шектеулерді жеңілдетуге бағытталған нормативтік өзгерістермен тұспа-тұс келіп отыр; атап айтқанда, SDN-1 санатына жататын геномы редакцияланған дақылдарды дәстүрлі селекция жолымен алынған дақылдармен тең дәрежеде қарастыру арқылы. Мұндай өзгерістер дала сынақтарын, коммерцияландыруды және халықаралық ынтымақтастықты жеделдетеді деп күтілуде. Дегенмен трансформация тиімділігіндегі тар жолдар, нысанадан тыс (off-target) әсерлерді бағалау, күрделі белгілерді бақылау, қоғамдық қабылдау және нормативтік базаның шешілмеген егжей-тегжейлері сияқты бірқатар мәселелер әлі де сақталып отыр. Соған қарамастан, геномды редакциялау жаңа буын дәнді дақылдар селекциясындағы орталық технологияға айналуға бет алды; ол төзімділігі мен өнімділігі жоғары әрі әртүрлі өнеркәсіптік қажеттіліктерге бейімделгіш сорттарды жасауға мүмкіндік береді.
KeywordsКлючевые словаТүйін сөздер
1. Introduction 1. Введение 1. Кіріспе
Barley (Hordeum vulgare) is one of the major cereal crops worldwide, following wheat (Triticum aestivum), maize (Zea mays), and rice (Oryza sativa). It serves diverse purposes, including food, feed, and malting, and contributes approximately 150 million tons to annual global production, forming a key component of agricultural systems across many regions [1]. However, climate change, emerging diseases, soil degradation, and shifting demands from farmers and consumers continue to drive the need for new cultivars. These challenges underscore the necessity for breeding methods that enable more rapid and precise improvement than conventional approaches.
Conventional breeding has achieved substantial progress in yield, disease resistance, and quality traits, yet it also faces significant limitations. A major bottleneck is the depletion of accessible genetic resources. When available germplasm lacks desirable traits, breeders may need to rely on wide crosses with landraces or wild relatives, which substantially prolong breeding timelines. Moreover, introducing traits from genetically diverse wild relatives often results in linkage drag, necessitating numerous backcrosses to recover elite genetic backgrounds.
Targeted mutagenesis, commonly referred to as genome editing, has emerged as an innovative approach to overcome these constraints. Because specific genes can be precisely modified, elite cultivars can be directly improved, representing a major advantage over conventional methods. In polyploid crops such as wheat, simultaneous targeting of homoeologous genes across the A, B, and D subgenomes can generate strong phenotypic effects. This review provides a comprehensive overview of recent advances in genome editing in barley, its applications in cultivar development, and current regulatory trends, and discusses prospects and remaining challenges.
From a breeding perspective, the greatest advantage of genome editing lies in its precision. Because specific alleles can be modified without altering the broader genetic background, resistance can be introduced directly into elite cultivars. This is particularly valuable for avoiding linkage drag associated with introgression from wild relatives.
Ячмень (Hordeum vulgare) — одна из основных зерновых культур в мире, уступающая лишь пшенице (Triticum aestivum), кукурузе (Zea mays) и рису (Oryza sativa). Он используется в самых разных целях, включая продовольствие, корма и солодоращение, и обеспечивает около 150 миллионов тонн ежегодного мирового производства, оставаясь ключевым компонентом сельскохозяйственных систем во многих регионах [1]. Однако изменение климата, появление новых болезней, деградация почв и меняющиеся запросы фермеров и потребителей продолжают определять потребность в новых сортах. Эти вызовы подчёркивают необходимость методов селекции, обеспечивающих более быстрое и точное улучшение по сравнению с традиционными подходами.
Традиционная селекция достигла существенного прогресса в отношении урожайности, устойчивости к болезням и признаков качества, однако она сталкивается и со значительными ограничениями. Одним из главных узких мест является исчерпание доступных генетических ресурсов. Когда имеющийся генофонд лишён желаемых признаков, селекционерам может потребоваться прибегать к отдалённым скрещиваниям с местными сортами (ландрасами) или дикими сородичами, что существенно удлиняет сроки селекционного процесса. Более того, перенос признаков от генетически разнообразных диких сородичей часто сопровождается сцепленным балластом (linkage drag), что требует многочисленных беккроссов для восстановления элитного генетического фона.
Таргетный мутагенез, обычно называемый редактированием генома, возник как инновационный подход к преодолению этих ограничений. Поскольку отдельные гены могут быть модифицированы с высокой точностью, элитные сорта поддаются непосредственному улучшению, что представляет собой важнейшее преимущество перед традиционными методами. У полиплоидных культур, таких как пшеница, одновременное воздействие на гомеологичные гены субгеномов A, B и D способно давать выраженные фенотипические эффекты. В настоящем обзоре представлен всесторонний анализ последних достижений в области редактирования генома ячменя, его применения при создании сортов и современных нормативных тенденций, а также обсуждаются перспективы и сохраняющиеся проблемы.
С точки зрения селекции наибольшим преимуществом редактирования генома является его точность. Поскольку конкретные аллели могут быть изменены без изменения общего генетического фона, устойчивость можно вводить непосредственно в элитные сорта. Это особенно ценно для того, чтобы избежать сцепленного балласта (linkage drag), связанного с интрогрессией от диких сородичей.
Арпа (Hordeum vulgare) бидайдан (Triticum aestivum), жүгеріден (Zea mays) және күріштен (Oryza sativa) кейінгі әлемдегі негізгі дәнді дақылдардың бірі болып табылады. Ол азық-түлік, мал азығы және уыт өндірісі сияқты алуан түрлі мақсаттарда пайдаланылады әрі жыл сайынғы жаһандық өндіріске шамамен 150 миллион тонна үлес қосып, көптеген өңірлердегі ауыл шаруашылығы жүйелерінің негізгі құрамдас бөлігін құрайды [1]. Дегенмен климаттың өзгеруі, жаңадан пайда болып жатқан аурулар, топырақ деградациясы, сондай-ақ фермерлер мен тұтынушылар сұранысының өзгеруі жаңа сорттарға деген қажеттілікті үздіксіз арттырып отыр. Бұл сын-қатерлер дәстүрлі тәсілдермен салыстырғанда жылдамырақ әрі дәлірек жақсартуға мүмкіндік беретін селекция әдістерінің қажеттілігін айқындай түседі.
Дәстүрлі селекция өнімділік, ауруларға төзімділік және сапа белгілері бойынша елеулі жетістіктерге қол жеткізді, дегенмен ол сонымен қатар айтарлықтай шектеулерге тап болады. Негізгі кедергілердің бірі — қолжетімді генетикалық ресурстардың сарқылуы. Қолда бар гермоплазмада қажетті белгілер болмаған жағдайда, селекционерлерге жергілікті сорттармен (ландрастармен) немесе жабайы туыстармен алшақ будандастыруға жүгінуге тура келеді, бұл селекция мерзімін едәуір ұзартады. Оның үстіне, генетикалық жағынан әртекті жабайы туыстардан белгілерді енгізу көбіне тіркескен балласт (linkage drag) құбылысын тудырады, бұл элиталық генетикалық негізді қалпына келтіру үшін көптеген беккростарды қажет етеді.
Әдетте геномды редакциялау деп аталатын нысаналы мутагенез осы шектеулерді еңсерудің инновациялық тәсілі ретінде қалыптасты. Нақты гендерді дәл өзгертуге мүмкіндік болғандықтан, элиталық сорттарды тікелей жақсартуға болады, бұл дәстүрлі әдістермен салыстырғандағы басты артықшылық болып табылады. Бидай сияқты полиплоидты дақылдарда A, B және D субгеномдарындағы гомеолог гендерді бір мезгілде нысанаға алу күшті фенотиптік әсерлер тудыруы мүмкін. Бұл шолуда арпадағы геномды редакциялаудың соңғы жетістіктеріне, оның сорт жасаудағы қолданысына және қазіргі нормативтік үрдістерге жан-жақты сипаттама беріліп, болашақ перспективалар мен шешілмеген мәселелер талқыланады.
Селекция тұрғысынан алғанда, геномды редакциялаудың ең үлкен артықшылығы оның дәлдігінде. Жалпы генетикалық негізді өзгертпей-ақ нақты аллельдерді түрлендіруге болатындықтан, төзімділікті тікелей элиталық сорттарға енгізуге мүмкіндік туады. Бұл әсіресе жабайы туыстардан интрогрессияға байланысты туындайтын тіркескен балласттан (linkage drag) аулақ болу үшін аса құнды.
2. Evolution of Targeted Mutagenesis Tools 2. Эволюция инструментов таргетного мутагенеза 2. Нысаналы мутагенез құралдарының эволюциясы
Targeted mutagenesis began with the development of early meganucleases, followed by zinc finger nucleases (ZFNs), which represented the first generation of genome editing tools applied in plants and other organisms [2]. However, these tools required complex protein engineering and design, limiting their widespread adoption in plant research. The subsequent emergence of transcription activator-like effector nucleases (TALENs), together with the establishment of modular assembly systems, made genome editing more accessible, yet the labor-intensive design process continued to restrict their use to a limited number of plant species [3]. The field then advanced dramatically with the introduction of clustered regularly interspaced short palindromic repeats/CRISPR-associated 9 (CRISPR/Cas9) systems. For detailed mechanisms of each tool, readers are referred to Hisano et al. (2021) [4]. As widely recognized, the versatility, simplicity, and precision of CRISPR/Cas9 technologies are remarkable, leading to the awarding of the 2020 Nobel Prize in Chemistry to Dr. Emmanuelle Charpentier and Dr. Jennifer Doudna. Over the past decade, rapid technological progress has been made in CRISPR/Cas9 optimization, discovery of new Cas proteins, multiplex editing, base editing, prime editing, and DNA-free editing [5]. In addition, machine-learning-based prediction models for mutation outcomes have been developed, improving the accuracy of target selection [6]. Meanwhile, TALENs continue to be used for organellar genome editing in plants [7,8].
Although Cas9 remains the most widely used nuclease, Cas12a (Cpf1) and Cas3 systems have also been developed for plant applications [9,10]. CRISPR/Cas9 is the predominant tool in cereals due to its flexible guide RNA (gRNA) design and high activity. Cas12a, which recognizes T-rich protospacer adjacent motifs (PAMs) and generates staggered DNA breaks, is well suited for knock-in editing [11,12]. Cas12a also processes polycistronic gRNAs autonomously, providing a major advantage in polyploid crops where simultaneous editing of multiple homoeologs is required [13]. Cas3, an advanced genome editing technology originating from Japan, enables extensive DNA deletions with exceptionally high specificity [14]. Base editing systems (CBE and ABE) utilize Cas9-derived nickases [15] and allow nucleotide substitutions without inducing double-strand breaks, making them useful for fine-tuning gene function or recreating natural variants. Prime editing, which fuses Cas9 to a reverse transcriptase and uses a gRNA as a template for cDNA synthesis, enables precise insertions, deletions, and substitutions [16].
For plant applications, efforts have also focused on optimizing genome editing components and identifying suitable targets. For example, RNA polymerase III (Pol III) promoters isolated from the same species have been used to enhance gRNA expression, and systems for more stable Cas9 expression, through promoter selection or codon optimization, have been established [17,18]. Multiplex editing has become an efficient strategy in crop breeding. Many quality traits are controlled by multiple gene families, making simultaneous editing of several loci advantageous. Multiplex editing can be achieved either by introducing multiple gRNA expression cassettes or by transcribing a single polycistronic mRNA that is subsequently processed into individual gRNAs [19,20].
Targeted mutagenesis without introducing exogenous DNA has gained importance from regulatory and societal perspectives. DNA-free editing using CRISPR/Cas ribonucleoproteins (RNPs) has been successfully demonstrated in crops and may fall under more permissive regulatory categories [21,22]. In plant species amenable to virus vectors, transient expression followed by segregation can also be used to eliminate transgenes [23]. These approaches reduce off-target risks associated with prolonged nuclease expression and facilitate regulatory compliance. Numerous computational tools have been developed for target and off-target prediction [24].
Таргетный мутагенез начался с создания первых мегануклеаз, за которыми последовали нуклеазы «цинковых пальцев» (ZFN), представлявшие собой первое поколение инструментов редактирования генома, применённых у растений и других организмов [2]. Однако эти инструменты требовали сложной белковой инженерии и конструирования, что ограничивало их широкое внедрение в исследованиях растений. Последующее появление нуклеаз на основе эффекторов, подобных активаторам транскрипции (TALEN), вместе с созданием систем модульной сборки сделало редактирование генома более доступным, однако трудоёмкость процесса конструирования по-прежнему ограничивала их применение небольшим числом видов растений [3]. Затем эта область получила стремительное развитие с появлением систем коротких палиндромных повторов, регулярно расположенных группами, и ассоциированного с ними белка 9 (CRISPR/Cas9). Подробное описание механизмов действия каждого из этих инструментов приведено в работе Hisano et al. (2021) [4]. Как общепризнано, универсальность, простота и точность технологий CRISPR/Cas9 являются выдающимися, что привело к присуждению Нобелевской премии по химии 2020 года д-ру Emmanuelle Charpentier и д-ру Jennifer Doudna. За последнее десятилетие достигнут стремительный технологический прогресс в оптимизации CRISPR/Cas9, открытии новых Cas-белков, мультиплексном редактировании, редактировании оснований, прайм-редактировании и ДНК-свободном редактировании [5]. Кроме того, разработаны основанные на машинном обучении модели предсказания результатов мутаций, повышающие точность выбора мишеней [6]. В то же время TALEN продолжают использоваться для редактирования геномов органелл у растений [7,8].
Хотя Cas9 остаётся наиболее широко используемой нуклеазой, для применения у растений разработаны также системы Cas12a (Cpf1) и Cas3 [9,10]. CRISPR/Cas9 является преобладающим инструментом у зерновых культур благодаря гибкости конструирования направляющей РНК (гРНК) и высокой активности. Cas12a, которая распознаёт богатые тимином (T-rich) прилегающие к протоспейсеру мотивы (PAM) и образует ступенчатые разрывы ДНК, хорошо подходит для нокин-редактирования [11,12]. Cas12a также самостоятельно процессирует полицистронные гРНК, что даёт существенное преимущество у полиплоидных культур, где требуется одновременное редактирование нескольких гомеологов [13]. Cas3, передовая технология редактирования генома, созданная в Японии, позволяет осуществлять протяжённые делеции ДНК с исключительно высокой специфичностью [14]. Системы редактирования оснований (CBE и ABE) используют производные Cas9 никазы [15] и позволяют производить нуклеотидные замены без образования двухцепочечных разрывов, что делает их полезными для тонкой настройки функции генов или воспроизведения природных вариантов. Прайм-редактирование, при котором Cas9 объединяется с обратной транскриптазой, а гРНК служит матрицей для синтеза кДНК, обеспечивает точные вставки, делеции и замены [16].
Применительно к растениям усилия были также сосредоточены на оптимизации компонентов систем редактирования генома и выявлении подходящих мишеней. Например, для усиления экспрессии гРНК использовали промоторы РНК-полимеразы III (Pol III), выделенные из того же вида, а также были созданы системы более стабильной экспрессии Cas9 за счёт подбора промоторов или кодоновой оптимизации [17,18]. Мультиплексное редактирование стало эффективной стратегией в селекции сельскохозяйственных культур. Многие признаки качества контролируются несколькими семействами генов, что делает одновременное редактирование нескольких локусов целесообразным. Мультиплексное редактирование может быть реализовано либо путём введения нескольких кассет экспрессии гРНК, либо путём транскрипции единой полицистронной мРНК, которая впоследствии процессируется до отдельных гРНК [19,20].
Таргетный мутагенез без введения экзогенной ДНК приобрёл особое значение с нормативной и общественной точек зрения. ДНК-свободное редактирование с использованием рибонуклеопротеинов (RNP) CRISPR/Cas было успешно продемонстрировано на сельскохозяйственных культурах и может подпадать под более мягкие категории нормативного регулирования [21,22]. У видов растений, пригодных для применения вирусных векторов, для устранения трансгенов может также использоваться транзиентная экспрессия с последующим расщеплением в потомстве [23]. Эти подходы снижают риски нецелевых (off-target) эффектов, связанных с длительной экспрессией нуклеазы, и облегчают соблюдение нормативных требований. Разработаны многочисленные вычислительные инструменты для предсказания мишеней и нецелевых сайтов [24].
Нысаналы мутагенез алғашқы мегануклеазаларды жасаудан басталды, олардан кейін өсімдіктер мен басқа да организмдерде қолданылған геномды редакциялау құралдарының бірінші буынын білдіретін «мырыш саусақ» нуклеазалары (ZFN) пайда болды [2]. Алайда бұл құралдар күрделі ақуыздық инженерия мен дизайнды талап етті, бұл олардың өсімдіктерді зерттеуде кеңінен қолданылуын шектеді. Кейіннен транскрипция активаторына ұқсас эффекторлық нуклеазалардың (TALEN) пайда болуы және модульдік жинау жүйелерінің әзірленуі геномды редакциялауды анағұрлым қолжетімді етті, дегенмен еңбекті көп қажет ететін дизайн процесі олардың қолданылуын өсімдік түрлерінің шектеулі санымен шектеп келді [3]. Бұдан кейін тұрақты аралықпен топтасқан қысқа палиндромды қайталанулар/CRISPR-мен байланысты 9 (CRISPR/Cas9) жүйелерінің енгізілуі арқасында бұл сала түбегейлі алға жылжыды. Әрбір құралдың механизмдері туралы толық мәліметтерді оқырмандар Hisano et al. (2021) еңбегінен таба алады [4]. Жалпыға белгілі болғандай, CRISPR/Cas9 технологияларының әмбебаптығы, қарапайымдылығы және дәлдігі айрықша, соның нәтижесінде 2020 жылғы химия саласындағы Нобель сыйлығы доктор Emmanuelle Charpentier мен доктор Jennifer Doudna-ға берілді. Соңғы онжылдықта CRISPR/Cas9 жүйесін оңтайландыруда, жаңа Cas ақуыздарын ашуда, мультиплексті редакциялауда, негіздерді редакциялауда, прайм-редакциялауда және ДНҚ-сыз редакциялауда жедел технологиялық ілгерілеу орын алды [5]. Сонымен қатар мутация нәтижелерін болжаудың машиналық оқытуға негізделген модельдері әзірленіп, нысананы таңдау дәлдігі артты [6]. Сонымен бірге TALEN жүйелері өсімдіктерде органеллалар геномын редакциялау үшін әлі де қолданылып келеді [7,8].
Cas9 ең кең қолданылатын нуклеаза болып қала берсе де, өсімдіктерде қолдану үшін Cas12a (Cpf1) және Cas3 жүйелері де әзірленді [9,10]. CRISPR/Cas9 бағыттаушы РНҚ-ны (гРНҚ) икемді жобалау мүмкіндігі мен жоғары белсенділігінің арқасында дәнді дақылдарда басым құрал болып табылады. T-нуклеотидтерге бай протоспейсерге іргелес мотивтерді (PAM) танитын және ДНҚ-ның сатылы үзілістерін түзетін Cas12a нокин редакциялау үшін өте қолайлы [11,12]. Сондай-ақ Cas12a полицистронды гРНҚ-ларды өз бетінше өңдейді, бұл бірнеше гомеологты бір мезгілде редакциялау қажет полиплоидты дақылдарда елеулі артықшылық береді [13]. Жапонияда жасалған озық геномды редакциялау технологиясы Cas3 айрықша жоғары спецификалықпен ДНҚ-ның ауқымды делецияларын жүргізуге мүмкіндік береді [14]. Негіздерді редакциялау жүйелері (CBE және ABE) Cas9 негізінде алынған никазаларды пайдаланады [15] әрі қос тізбекті үзілістерді тудырмай нуклеотидтік алмасуларды жүзеге асыруға мүмкіндік береді, бұл оларды ген қызметін дәл реттеу немесе табиғи нұсқаларды қайта жаңғырту үшін пайдалы етеді. Cas9-ды кері транскриптазамен біріктіретін және кДНҚ синтезіне гРНҚ-ны матрица ретінде пайдаланатын прайм-редакциялау дәл инсерциялар, делециялар мен алмасулар жүргізуге мүмкіндік береді [16].
Өсімдіктерде қолдану үшін геномды редакциялау компоненттерін оңтайландыруға және қолайлы нысаналарды анықтауға да күш салынды. Мысалы, гРНҚ экспрессиясын күшейту мақсатында сол түрдің өзінен бөлініп алынған РНҚ-полимераза III (Pol III) промоторлары пайдаланылды, сондай-ақ промоторды таңдау немесе кодондарды оңтайландыру арқылы Cas9-дың тұрақтырақ экспрессиясын қамтамасыз ететін жүйелер жасалды [17,18]. Мультиплексті редакциялау дақыл селекциясында тиімді стратегияға айналды. Көптеген сапа белгілері бірнеше ген тұқымдастарымен бақыланады, сондықтан бірнеше локусты бір мезгілде редакциялау тиімді болып табылады. Мультиплексті редакциялауға бірнеше гРНҚ экспрессиялық кассетасын енгізу арқылы немесе кейіннен жеке гРНҚ-ларға өңделетін бірыңғай полицистронды мРНҚ-ны транскрипциялау арқылы қол жеткізуге болады [19,20].
Экзогендік ДНҚ енгізбей жүргізілетін нысаналы мутагенез нормативтік және қоғамдық тұрғыдан ерекше маңызға ие болды. CRISPR/Cas рибонуклеопротеиндерін (RNP) пайдаланатын ДНҚ-сыз редакциялау дақылдарда сәтті көрсетілді және неғұрлым жеңілдетілген нормативтік санаттарға жатқызылуы мүмкін [21,22]. Вирустық векторларға бейім өсімдік түрлерінде трансгендерді жою үшін уақытша экспрессияны, одан кейін ұрпақтарда сегрегациялауды да қолдануға болады [23]. Бұл тәсілдер нуклеазаның ұзаққа созылған экспрессиясымен байланысты нысанадан тыс (off-target) қауіптерді азайтады және нормативтік талаптарға сәйкестікті жеңілдетеді. Нысаналы және нысанадан тыс сайттарды болжау үшін көптеген есептеу құралдары әзірленді [24].
3. Status of Targeted Mutagenesis in Barley 3. Современное состояние таргетного мутагенеза у ячменя 3. Арпадағы нысаналы мутагенездің қазіргі жай-күйі
3.1 Development of Efficient Transformation Systems 3.1 Разработка эффективных систем трансформации 3.1 Тиімді трансформация жүйелерін жасау
Efficient transformation systems are essential for applying targeted mutagenesis in barley. Historically, barley has been considered recalcitrant to transformation, and only a limited number of cultivars were amenable to genetic modification, slowing the integration of targeted mutagenesis into breeding programs. Barley transformation has most relied on the cultivar ‘Golden Promise’, which exhibits high susceptibility to Agrobacterium-mediated transformation and has enabled numerous gene function studies [25]. In cultivars less amenable to Agrobacterium-mediated transformation, particle bombardment is used, although it often results in multicopy insertions or fragmented endogenous DNA.
Recent advances, including optimized tissue culture conditions and identification of loci associated with transformation efficiency, have expanded the range of transformable barley cultivars [26-28]. Moreover, introducing morphogenic regulators such as WUSCHEL2 (WUS2) and BABY BOOM (BBM) has dramatically improved regeneration efficiency and reduced genotype dependency in barley [29]. DNA-free editing using CRISPR/Cas ribonucleoproteins (RNPs) has also been demonstrated in plants, enabling the generation of edited lines without exogenous DNA [30].
Эффективные системы трансформации необходимы для применения таргетного мутагенеза у ячменя. Исторически ячмень считался культурой, трудно поддающейся трансформации, и лишь ограниченное число сортов было пригодно для генетической модификации, что замедляло внедрение таргетного мутагенеза в селекционные программы. Трансформация ячменя в наибольшей степени опиралась на сорт «Golden Promise», который отличается высокой восприимчивостью к Agrobacterium-опосредованной трансформации и позволил выполнить многочисленные исследования функций генов [25]. У сортов, менее пригодных к Agrobacterium-опосредованной трансформации, применяют биобаллистику (бомбардировку микрочастицами), хотя этот метод нередко приводит к мультикопийным вставкам или фрагментации эндогенной ДНК.
Недавние достижения, включая оптимизацию условий культуры тканей и идентификацию локусов, связанных с эффективностью трансформации, расширили круг трансформируемых сортов ячменя [26-28]. Кроме того, введение морфогенных регуляторов, таких как WUSCHEL2 (WUS2) и BABY BOOM (BBM), существенно повысило эффективность регенерации и снизило генотипическую зависимость у ячменя [29]. ДНК-свободное редактирование с использованием рибонуклеопротеинов (RNP) CRISPR/Cas также было продемонстрировано у растений, что позволяет получать отредактированные линии без экзогенной ДНК [30].
Арпада нысаналы мутагенезді қолдану үшін тиімді трансформация жүйелері аса қажет. Тарихи тұрғыдан арпа трансформацияға көнбейтін дақыл ретінде қарастырылып келді және генетикалық түрлендіруге тек шектеулі сандағы сорттар ғана бейім болды, бұл нысаналы мутагенездің селекциялық бағдарламаларға енуін баяулатты. Арпа трансформациясы негізінен ‘Golden Promise’ сортына сүйенді; бұл сорт Agrobacterium арқылы жүзеге асырылатын трансформацияға жоғары бейімділік көрсетеді және ген қызметін зерттеуге арналған көптеген жұмыстарға мүмкіндік берді [25]. Agrobacterium арқылы трансформацияға нашар бейім сорттарда бөлшектермен бомбалау қолданылады, алайда бұл әдіс жиі көпкөшірмелі инсерцияларға немесе эндогендік ДНҚ-ның фрагменттелуіне алып келеді.
Соңғы жетістіктер, оның ішінде ұлпа өсіру жағдайларын оңтайландыру және трансформация тиімділігімен байланысты локустарды анықтау, трансформацияға қабілетті арпа сорттарының ауқымын кеңейтті [26-28]. Сонымен қатар, WUSCHEL2 (WUS2) және BABY BOOM (BBM) сияқты морфогендік реттеушілерді енгізу арпада регенерация тиімділігін айтарлықтай арттырып, генотипке тәуелділікті төмендетті [29]. CRISPR/Cas рибонуклеопротеиндерін (RNP) пайдаланатын ДНҚ-сыз редакциялау да өсімдіктерде көрсетілді, бұл экзогендік ДНҚ-ны енгізбей-ақ редакцияланған линиялар алуға мүмкіндік береді [30].
3.2 Biotic and Abiotic Stress Tolerance 3.2 Устойчивость к биотическим и абиотическим стрессам 3.2 Биотикалық және абиотикалық стреске төзімділік
The first successful examples of genome editing in barley were reported by Wendt et al. (2013) and Lawrenson et al. (2015) for TALENs and the CRISPR system, respectively, experimentally demonstrating that these tools can be effectively used in barley [31,32].
Disease resistance represents one of the most active areas of targeted mutagenesis in barley, driven by the need to reduce fungicide use and stabilize yields under environmental fluctuations. Early landmark studies demonstrated that CRISPR/Cas9 systems can efficiently disrupt susceptibility genes and confer durable resistance without introducing foreign DNA. In hexaploid wheat, ahead of barley, simultaneous editing of the three subgenome alleles of the MILDEW-RESISTANCE LOCUS (TaMLO) conferred strong, genetically stable resistance to powdery mildew, demonstrating the feasibility of multi-allelic editing in polyploid crops [33]. In barley, HvMLO knockout lines have similarly contributed to powdery mildew resistance research [34]. A double knockout of two members of the mitochondrial HvMORC gene family successfully generated barley lines exhibiting resistance to both Blumeria graminis and Fusarium graminearum [35]. Targeted mutagenesis of NFXL1, a gene associated with fusarium head blight, has generated novel resistance alleles in wheat; however, no comparable resistance genes have yet been identified in barley [36]. Kis et al. (2019) also reported successful generation of wheat lines exhibiting strong resistance to wheat dwarf virus, demonstrating the feasibility of conferring antiviral resistance through genome engineering [37].
Seed dormancy and pre-harvest sprouting (PHS) are critical traits affecting grain quality and storability in barley. Genome editing has contributed to dissecting and modifying the dormancy regulatory network, including ABA signaling and key transcription factors. In malting barley, achieving an optimal balance between dormancy and germination is essential. HvQsd1 and HvQsd2 have been identified as central dormancy genes, and CRISPR/Cas9-based targeted mutagenesis has demonstrated the ability to precisely adjust dormancy strength and germination timing [38]. Taken together, these studies demonstrate that targeted mutagenesis has substantially advanced both the understanding and improvement of stress tolerance in barley, establishing it as a practical and increasingly indispensable tool for breeding resilient cultivars.
Первые успешные примеры редактирования генома у ячменя были описаны Wendt et al. (2013) и Lawrenson et al. (2015) для TALEN и системы CRISPR соответственно, что экспериментально подтвердило возможность эффективного применения этих инструментов у ячменя [31,32].
Устойчивость к болезням представляет собой одно из наиболее активно развивающихся направлений таргетного мутагенеза у ячменя, что обусловлено необходимостью сократить применение фунгицидов и стабилизировать урожайность в условиях колебаний внешней среды. Ранние основополагающие работы показали, что системы CRISPR/Cas9 способны эффективно нарушать функцию генов восприимчивости и придавать длительную устойчивость без введения чужеродной ДНК. У гексаплоидной пшеницы, ранее чем у ячменя, одновременное редактирование трёх субгеномных аллелей локуса MILDEW-RESISTANCE LOCUS (TaMLO) обеспечило выраженную и генетически стабильную устойчивость к мучнистой росе, продемонстрировав осуществимость мультиаллельного редактирования у полиплоидных культур [33]. У ячменя линии с нокаутом HvMLO аналогичным образом внесли вклад в исследования устойчивости к мучнистой росе [34]. Двойной нокаут двух представителей митохондриального генного семейства HvMORC позволил получить линии ячменя, проявляющие устойчивость как к Blumeria graminis, так и к Fusarium graminearum [35]. Таргетный мутагенез гена NFXL1, связанного с фузариозом колоса, позволил получить новые аллели устойчивости у пшеницы; однако у ячменя сопоставимые гены устойчивости до сих пор не идентифицированы [36]. Kis et al. (2019) также сообщили об успешном получении линий пшеницы с высокой устойчивостью к вирусу карликовости пшеницы, что демонстрирует возможность придания противовирусной устойчивости методами геномной инженерии [37].
Покой семян и предуборочное прорастание (PHS) относятся к важнейшим признакам, влияющим на качество и сохраняемость зерна ячменя. Редактирование генома способствовало как расшифровке, так и модификации регуляторной сети покоя, включая сигнальный путь АБК и ключевые транскрипционные факторы. Для пивоваренного ячменя принципиально важно достижение оптимального баланса между покоем и прорастанием. HvQsd1 и HvQsd2 были идентифицированы как центральные гены покоя, и таргетный мутагенез на основе CRISPR/Cas9 показал возможность точной настройки глубины покоя и сроков прорастания [38]. В совокупности эти исследования свидетельствуют о том, что таргетный мутагенез существенно продвинул как понимание, так и улучшение стрессоустойчивости ячменя, утвердив его в качестве практичного и всё более незаменимого инструмента селекции устойчивых сортов.
Арпада геномды редакциялаудың алғашқы табысты мысалдарын тиісінше TALEN және CRISPR жүйесі үшін Wendt et al. (2013) және Lawrenson et al. (2015) сипаттады; бұл жұмыстар аталған құралдардың арпада тиімді қолданыла алатынын эксперименттік түрде дәлелдеді [31,32].
Ауруларға төзімділік — арпадағы нысаналы мутагенездің ең белсенді дамып келе жатқан бағыттарының бірі; оның қозғаушы күші фунгицидтерді қолдануды азайту және қоршаған орта жағдайларының құбылмалылығы кезінде өнімділікті тұрақтандыру қажеттілігі болып табылады. Алғашқы бетбұрысты зерттеулер CRISPR/Cas9 жүйелерінің бөгде ДНҚ енгізбей-ақ сезімталдық гендерін тиімді бұза алатынын және ұзақ мерзімді төзімділік бере алатынын көрсетті. Арпадан бұрын гексаплоидты бидайда MILDEW-RESISTANCE LOCUS (TaMLO) генінің үш субгеномдағы аллельдерін бір мезгілде редакциялау ұнтақ шыққа қарсы күшті әрі генетикалық тұрғыдан тұрақты төзімділік қалыптастырды, бұл полиплоидты дақылдарда көпаллельді редакциялаудың жүзеге асырылатынын көрсетті [33]. Арпада HvMLO нокаут линиялары да ұнтақ шыққа төзімділікті зерттеуге ұқсас үлес қосты [34]. Митохондриялық HvMORC ген тұқымдасының екі мүшесін қос нокаутқа ұшырату Blumeria graminis және Fusarium graminearum қоздырғыштарының екеуіне де төзімділік көрсететін арпа линияларын сәтті алуға мүмкіндік берді [35]. Масақ фузариозымен байланысты NFXL1 генінің нысаналы мутагенезі бидайда төзімділіктің жаңа аллельдерін берді; алайда арпада оған ұқсас төзімділік гендері әзірге анықталған жоқ [36]. Kis et al. (2019) сондай-ақ бидайдың ергежейлілік вирусына күшті төзімділік көрсететін бидай линияларын алудың сәтті мысалын сипаттап, геномдық инженерия арқылы вирусқа қарсы төзімділік қалыптастырудың мүмкін екенін көрсетті [37].
Тұқым тыныштығы мен жинау алдындағы өну (PHS) — арпада дән сапасы мен сақталу қабілетіне әсер ететін аса маңызды белгілер. Геномды редакциялау тыныштықты реттеу желісін, оның ішінде ABA сигнал беруін және негізгі транскрипция факторларын, талдауға және түрлендіруге үлес қосты. Уыттық арпада тыныштық пен өну арасындағы оңтайлы теңгерімге қол жеткізу аса маңызды. HvQsd1 және HvQsd2 гендері тыныштықтың негізгі гендері ретінде анықталды, ал CRISPR/Cas9 негізіндегі нысаналы мутагенез тыныштықтың дәрежесі мен өну мерзімін дәл реттеу мүмкіндігін көрсетті [38]. Жиынтығында бұл зерттеулер нысаналы мутагенездің арпадағы стреске төзімділікті түсінуді де, оны жақсартуды да айтарлықтай ілгерілеткенін көрсетеді және оны төзімді сорттарды шығаруға арналған практикалық әрі барған сайын таптырмас құрал ретінде орнықтырады.
3.3 Yield, Plant Architecture, and Quality Traits 3.3 Урожайность, архитектоника растения и признаки качества 3.3 Өнімділік, өсімдік архитектурасы және сапа белгілері
Yield-related traits are governed by complex genetic networks, making them sometimes tough to improve through conventional breeding. Targeted mutagenesis of the HvGA2ox8a gene increases plant height, enabling enhanced biomass production [39]. Improved lodging resistance has also been achieved by knocking out gibberellin 20-oxidase2 (GA20ox2) using CRISPR/Cas9 in barley [40]. Karunarathne et al. (2022) reported that a mutation in the abnormal cytokinin response1 repressor 1 (HvARE1) gene led to improved nitrogen use efficiency [41].
Quality traits are also important targets. In wheat, CRISPR-based mutagenesis of α-gliadin gene families has produced “low-gluten” lines with reduced immunogenic epitopes associated with celiac disease [42-44]. In barley, editing starch biosynthesis genes has enabled modification of the amylose/amylopectin ratio, with potential applications in malting, distilling, and food processing [45,46]. Zeng et al. (2020) reported improved vitamin E biosynthesis through CRISPR/Cas9-mediated targeted mutagenesis of homogentisate geranylgeranyl transferase (HGGT) and homogentisate phytyltransferase (HPT) [47]. For improving biofuel production in barley, Lee et al. (2021) targeted the caffeic acid O-methyltransferase 1 (HvCOMT1) gene and demonstrated that its mutation reduces lignin content and increases sugar yield [48]. The authors’ research group successfully introduced targeted mutations in the lignin biosynthesis gene HvCAD, reducing lignin content and revealing pleiotropic effects such as the orange lemma phenotype [49]. Gu et al. (2022) targeted SPDT, a phosphorus transporter, altering phosphorus allocation and demonstrating the potential for developing low-fertilizer-input cultivars [50]. Additionally, introducing mutations in NUD, the gene controlling hull adhesion, enabled rapid development of “naked” barley lines suitable for malting in crosses between malting cultivars and ‘Golden Promise’ [51]. Collectively, these findings show that targeted mutagenesis is effective for improving diverse traits related to yield, plant architecture, and quality, thereby expanding the potential of barley breeding.
Признаки, связанные с урожайностью, контролируются сложными генетическими сетями, что порой затрудняет их улучшение методами традиционной селекции. Таргетный мутагенез гена HvGA2ox8a увеличивает высоту растений, обеспечивая повышенное накопление биомассы [39]. Повышение устойчивости к полеганию у ячменя было также достигнуто путём нокаута гена гиббереллин-20-оксидазы 2 (GA20ox2) с помощью CRISPR/Cas9 [40]. Karunarathne et al. (2022) сообщили, что мутация в гене abnormal cytokinin response1 repressor 1 (HvARE1) приводила к повышению эффективности использования азота [41].
Признаки качества также являются важными мишенями. У пшеницы мутагенез семейств генов α-глиадинов на основе CRISPR позволил получить «низкоглютеновые» линии со сниженным числом иммуногенных эпитопов, ассоциированных с целиакией [42-44]. У ячменя редактирование генов биосинтеза крахмала дало возможность изменять соотношение амилозы и амилопектина, что имеет потенциальное применение в солодоращении, производстве спиртных напитков и пищевой промышленности [45,46]. Zeng et al. (2020) сообщили об усилении биосинтеза витамина E благодаря CRISPR/Cas9-опосредованному таргетному мутагенезу генов гомогентизат-геранилгеранилтрансферазы (HGGT) и гомогентизат-фитилтрансферазы (HPT) [47]. В целях повышения производства биотоплива из ячменя Lee et al. (2021) выбрали в качестве мишени ген кофейнокислой O-метилтрансферазы 1 (HvCOMT1) и показали, что его мутация снижает содержание лигнина и увеличивает выход сахаров [48]. Исследовательская группа автора успешно внесла таргетные мутации в ген биосинтеза лигнина HvCAD, что привело к снижению содержания лигнина и выявило плейотропные эффекты, такие как фенотип оранжевой наружной цветковой чешуи (orange lemma) [49]. Gu et al. (2022) выбрали в качестве мишени SPDT — транспортёр фосфора, изменив распределение фосфора и продемонстрировав возможность создания сортов с низкой потребностью в удобрениях [50]. Кроме того, внесение мутаций в ген NUD, контролирующий прилипание цветковых чешуй, позволило быстро получить «голозёрные» линии ячменя, пригодные для солодоращения, в скрещиваниях между пивоваренными сортами и сортом «Golden Promise» [51]. В совокупности эти результаты показывают, что таргетный мутагенез эффективен для улучшения разнообразных признаков, связанных с урожайностью, архитектоникой растения и качеством, тем самым расширяя возможности селекции ячменя.
Өнімділікке қатысты белгілер күрделі генетикалық желілермен реттеледі, сондықтан оларды дәстүрлі селекция жолымен жақсарту кейде қиынға соғады. HvGA2ox8a генінің нысаналы мутагенезі өсімдіктің биіктігін арттырып, биомасса өндірісін жоғарылатуға мүмкіндік береді [39]. Арпада CRISPR/Cas9 көмегімен гиббереллин 20-оксидаза2 (GA20ox2) генін нокаутқа ұшырату арқылы жатып қалуға төзімділікті арттыруға да қол жеткізілді [40]. Karunarathne et al. (2022) abnormal cytokinin response1 repressor 1 (HvARE1) геніндегі мутация азотты пайдалану тиімділігін арттыруға әкелгенін хабарлады [41].
Сапа белгілері де маңызды нысаналар болып табылады. Бидайда α-глиадин ген тұқымдастарының CRISPR негізіндегі мутагенезі целиакиямен байланысты иммуногендік эпитоптары азайтылған «глютені төмен» линияларды алуға мүмкіндік берді [42-44]. Арпада крахмал биосинтезі гендерін редакциялау амилоза/амилопектин арақатынасын өзгертуге мүмкіндік берді, бұл уыт өндірісінде, спирт айдау өнеркәсібінде және азық-түлікті қайта өңдеуде қолданылу әлеуетіне ие [45,46]. Zeng et al. (2020) гомогентизат геранилгеранилтрансфераза (HGGT) және гомогентизат фитилтрансфераза (HPT) гендерінің CRISPR/Cas9 арқылы жүзеге асырылған нысаналы мутагенезі E дәруменінің биосинтезін жақсартқанын хабарлады [47]. Арпадан биоотын өндірісін жақсарту мақсатында Lee et al. (2021) кофе қышқылы O-метилтрансфераза 1 (HvCOMT1) генін нысанаға алып, оның мутациясы лигнин мөлшерін азайтып, қант шығымын арттыратынын көрсетті [48]. Авторлардың ғылыми тобы лигнин биосинтезінің HvCAD геніне нысаналы мутациялар сәтті енгізіп, лигнин мөлшерін төмендетті және қызғылт сары гүлқауыз (orange lemma) фенотипі тәрізді плейотропты әсерлерді анықтады [49]. Gu et al. (2022) фосфор тасымалдаушысы SPDT генін нысанаға алып, фосфордың таралуын өзгертті және тыңайтқышты аз қажет ететін сорттар шығару әлеуетін көрсетті [50]. Сонымен қатар, қауыздың жабысуын бақылайтын NUD геніне мутациялар енгізу уыттық сорттар мен ‘Golden Promise’ сорты арасындағы будандастыруларда уыт өндірісіне жарамды «жалаңаш» арпа линияларын жылдам шығаруға мүмкіндік берді [51]. Жиынтығында бұл нәтижелер нысаналы мутагенездің өнімділікке, өсімдік архитектурасына және сапаға қатысты алуан түрлі белгілерді жақсартуда тиімді екенін көрсетеді және осылайша арпа селекциясының әлеуетін кеңейтеді.
4. Future Trends, Challenges, and Perspectives in Targeted Mutagenesis for Crop Breeding 4. Будущие тенденции, вызовы и перспективы таргетного мутагенеза в селекции сельскохозяйственных культур 4. Дақыл селекциясындағы нысаналы мутагенездің болашақ үрдістері, қиындықтары мен перспективалары
Countries such as Japan and the United States have taken early steps in establishing regulatory pathways for genome-edited crops, and several are already cultivated commercially as of 2025 [52]. In Japan, high-GABA tomatoes were sold on a trial basis in 2021, and by 2026, high-sugar tomatoes, waxy maize, small-tuber potatoes, and bananas with reduced browning are expected to become commercially available. In Europe, long-standing regulations that treated genome-edited crops as GMOs are being reconsidered. Under the emerging framework for new genomic techniques (NGTs), site-directed nuclease (SDN) 1 modifications may be regulated similarly to conventionally bred varieties [53,54]. This shift represents a major turning point for crop breeding. Note that SDN-2 and SDN-3 are regulated as recombinant DNA (genetically modified) plants. The principles underlying these methods are illustrated in Figure 1.
Такие страны, как Япония и Соединённые Штаты, одними из первых предприняли шаги по формированию нормативных механизмов для отредактированных по геному культур, и по состоянию на 2025 год несколько таких культур уже возделываются в коммерческих масштабах [52]. В Японии томаты с повышенным содержанием ГАМК поступили в продажу в пробном порядке в 2021 году, а к 2026 году ожидается появление на рынке томатов с повышенным содержанием сахаров, восковидной кукурузы, картофеля с мелкими клубнями и бананов с пониженным потемнением. В Европе пересматриваются давно действующие нормы, согласно которым отредактированные по геному культуры приравнивались к ГМО. В рамках формирующейся нормативной базы для новых геномных технологий (НГТ) модификации типа сайт-направленной нуклеазы (SDN) 1 могут регулироваться так же, как сорта, полученные традиционной селекцией [53,54]. Этот сдвиг представляет собой важный переломный момент для селекции сельскохозяйственных культур. Следует отметить, что SDN-2 и SDN-3 регулируются как растения с рекомбинантной ДНК (генетически модифицированные). Принципы, лежащие в основе этих методов, проиллюстрированы на рисунке 1.
Жапония мен Америка Құрама Штаттары сияқты елдер геномы редакцияланған дақылдар үшін нормативтік тетіктерді қалыптастыруда алғашқы қадамдарды жасады, ал бірқатар осындай дақыл 2025 жылғы жағдай бойынша коммерциялық түрде өсіріліп те жатыр [52]. Жапонияда GABA мөлшері жоғары қызанақ 2021 жылы сынақ ретінде сатылымға шықты, ал 2026 жылға қарай қант мөлшері жоғары қызанақ, балауызды жүгері, ұсақ түйнекті картоп және қараюы төмендетілген банан коммерциялық қолжетімді болады деп күтілуде. Еуропада геномы редакцияланған дақылдарды ГМО ретінде қарастырып келген, ұзақ уақыт бойы қолданылып келе жатқан нормативтік ережелер қайта қаралуда. Жаңа геномдық технологиялар (ЖГТ) үшін қалыптасып келе жатқан нормативтік база аясында сайт-бағытталған нуклеаза (SDN) 1 арқылы енгізілген өзгерістер дәстүрлі селекция жолымен алынған сорттармен ұқсас тәртіппен реттелуі мүмкін [53,54]. Бұл өзгеріс дақыл селекциясы үшін елеулі бетбұрыс болып табылады. SDN-2 және SDN-3 рекомбинанттық ДНҚ (генетикалық түрлендірілген) өсімдіктері ретінде реттелетінін атап өткен жөн. Осы әдістердің негізінде жатқан қағидаттар 1-суретте бейнеленген.
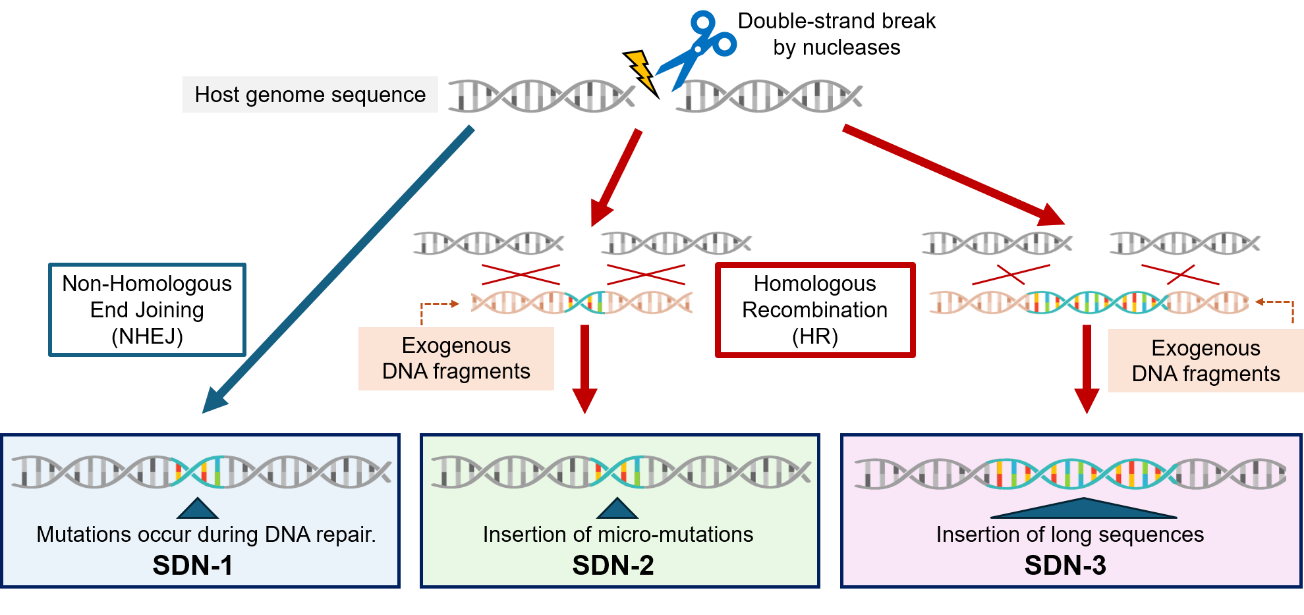
Figure 1. Types of Mutations Introduced by Site-Directed Nuclease (SDN) Techniques
SDN-1: In this approach, the target host genomic sequence is cleaved by a nuclease via non-homologous end joining (NHEJ), and small mutations (indicated by a triangle), such as short insertions, deletions, or substitutions, are introduced during the natural DNA repair process.
SDN-2: In this approach, after nuclease-mediated cleavage, homologous recombination (HR) occurs between the target genomic sequence and an exogenous DNA fragment homologous to the target sequence and containing a small, intended change. As a result, the mutation (indicated by a triangle) is introduced into the genome. Although the resulting mutation is indistinguishable from naturally occurring mutations, organisms produced by this method are regulated in the same manner as genetically modified (recombinant DNA) plants.
SDN-3: In this approach, after nuclease-mediated cleavage, HR occurs between the target genomic sequence and an exogenous DNA fragment homologous to the target sequence and containing a desired long DNA sequence. This allows the introduction of a long DNA sequence (indicated by a wide triangle) into the target genome. SDN-3 enables the precise insertion of complete genes or other genetic elements into a specified genomic region. Organisms produced by this method are treated as genetically modified (recombinant DNA) plants.
Рисунок 1. Типы мутаций, вносимых методами сайт-направленных нуклеаз (SDN)
SDN-1: при этом подходе целевая геномная последовательность хозяина расщепляется нуклеазой с последующим негомологичным соединением концов (NHEJ), и в ходе естественного процесса репарации ДНК вносятся небольшие мутации (обозначены треугольником), такие как короткие вставки, делеции или замены.
SDN-2: при этом подходе после опосредованного нуклеазой расщепления происходит гомологичная рекомбинация (HR) между целевой геномной последовательностью и экзогенным фрагментом ДНК, гомологичным целевой последовательности и содержащим небольшое запланированное изменение. В результате мутация (обозначена треугольником) вносится в геном. Хотя возникающая мутация неотличима от мутаций природного происхождения, организмы, полученные этим методом, регулируются так же, как генетически модифицированные растения (растения с рекомбинантной ДНК).
SDN-3: при этом подходе после опосредованного нуклеазой расщепления происходит HR между целевой геномной последовательностью и экзогенным фрагментом ДНК, гомологичным целевой последовательности и содержащим требуемую протяжённую последовательность ДНК. Это позволяет вводить протяжённую последовательность ДНК (обозначена широким треугольником) в целевой геном. SDN-3 обеспечивает точную вставку полноразмерных генов или иных генетических элементов в заданный участок генома. Организмы, полученные этим методом, рассматриваются как генетически модифицированные растения (растения с рекомбинантной ДНК).
1-сурет. Сайт-бағытталған нуклеаза (SDN) әдістерімен енгізілетін мутациялардың типтері
SDN-1: Бұл тәсілде иенің нысаналы геномдық тізбегі нуклеазамен кесіледі және гомологиялық емес ұштарды қосу (NHEJ) жолымен жүретін ДНҚ-ның табиғи репарациясы барысында қысқа инсерциялар, делециялар немесе нуклеотид алмасулары тәрізді шағын мутациялар (үшбұрышпен көрсетілген) енгізіледі.
SDN-2: Бұл тәсілде нуклеаза кескеннен кейін нысаналы геномдық тізбек пен оған гомологты әрі жоспарланған шағын өзгерісті қамтитын экзогендік ДНҚ фрагментінің арасында гомологиялық рекомбинация (HR) жүреді. Нәтижесінде мутация (үшбұрышпен көрсетілген) геномға енгізіледі. Түзілген мутацияны табиғи жолмен пайда болатын мутациялардан ажырату мүмкін болмағанымен, осы әдіспен алынған организмдер генетикалық түрлендірілген (рекомбинанттық ДНҚ) өсімдіктермен бірдей тәртіппен реттеледі.
SDN-3: Бұл тәсілде нуклеаза кескеннен кейін нысаналы геномдық тізбек пен оған гомологты әрі қажетті ұзын ДНҚ тізбегін қамтитын экзогендік ДНҚ фрагментінің арасында HR жүреді. Бұл нысаналы геномға ұзын ДНҚ тізбегін (кең үшбұрышпен көрсетілген) енгізуге мүмкіндік береді. SDN-3 толық гендерді немесе басқа да генетикалық элементтерді геномның нақты аймағына дәл енгізуге жағдай жасайды. Осы әдіспен алынған организмдер генетикалық түрлендірілген (рекомбинанттық ДНҚ) өсімдіктер ретінде қарастырылады.
For barley, a key crop in European agriculture, regulatory relaxation is expected to accelerate the development and field testing of genome-edited lines targeting disease resistance, climate resilience, and quality traits. Reduced regulatory burden will allow breeders to evaluate agronomic performance, environmental responses, and trait stability more rapidly. This is particularly important for traits strongly influenced by field conditions, such as tolerance or resistance to heat, drought, pre-harvest sprouting, and disease.
Despite these positive developments, several challenges remain. Public perception and consumer acceptance continue to influence market adoption, especially in regions with strong skepticism toward biotechnology. Traceability and detection of SDN-1 edits pose regulatory and methodological difficulties, as such edits may be indistinguishable from natural mutations. Intellectual property issues—including patents related to CRISPR tools and edited alleles—may also limit access for small breeding programs and public institutions.
Off-target effects require careful evaluation, yet comprehensive analysis is challenging in large and complex genomes such as those of barley and wheat. Whole-genome sequencing of edited lines remains costly for large-scale breeding programs and ensuring genome stability across generations is essential for regulatory approval and commercial deployment. Advances such as AI-assisted off-target prediction and high-precision editing systems are expected to mitigate these issues.
Для ячменя — ключевой культуры европейского сельского хозяйства — ослабление нормативных требований, как ожидается, ускорит создание и полевые испытания отредактированных по геному линий, нацеленных на устойчивость к болезням, климатическую устойчивость и признаки качества. Снижение нормативной нагрузки позволит селекционерам быстрее оценивать агрономические характеристики, реакции на условия среды и стабильность признаков. Это особенно важно для признаков, в значительной степени зависящих от полевых условий, таких как толерантность или устойчивость к жаре, засухе, предуборочному прорастанию (PHS) и болезням.
Несмотря на эти позитивные изменения, сохраняется ряд проблем. Общественное восприятие и потребительское признание продолжают влиять на принятие продукции рынком, особенно в регионах с выраженным скептицизмом в отношении биотехнологий. Прослеживаемость и выявление изменений типа SDN-1 создают нормативные и методические трудности, поскольку такие изменения могут быть неотличимы от естественных мутаций. Вопросы интеллектуальной собственности, включая патенты, связанные с инструментами CRISPR и отредактированными аллелями, также могут ограничивать доступ к ним для небольших селекционных программ и государственных учреждений.
Нецелевые (off-target) эффекты требуют тщательной оценки, однако всесторонний анализ затруднён в крупных и сложных геномах, таких как геномы ячменя и пшеницы. Полногеномное секвенирование отредактированных линий остаётся дорогостоящим для крупномасштабных селекционных программ, а обеспечение стабильности генома в ряду поколений имеет принципиальное значение для одобрения регулирующими органами и коммерческого внедрения. Ожидается, что такие достижения, как предсказание нецелевых сайтов с использованием ИИ и высокоточные системы редактирования, позволят смягчить эти проблемы.
Еуропа ауыл шаруашылығындағы негізгі дақыл болып табылатын арпа үшін нормативтік талаптардың жеңілдетілуі ауруларға төзімділікке, климаттық тұрақтылыққа және сапа белгілеріне бағытталған, геномы редакцияланған линияларды жасауды және оларды дала сынағынан өткізуді жеделдетеді деп күтілуде. Нормативтік жүктеменің азаюы селекционерлерге агрономиялық көрсеткіштерді, қоршаған орта әсеріне жауап реакциясын және белгілердің тұрақтылығын жылдамырақ бағалауға мүмкіндік береді. Бұл әсіресе ыстыққа, құрғақшылыққа, жинау алдындағы өнуге және ауруларға төзімділік немесе қарсы тұру қабілеті сияқты, дала жағдайларының ықпалы күшті белгілер үшін аса маңызды.
Осындай оң өзгерістерге қарамастан, бірқатар мәселе шешімін таппай отыр. Қоғамдық пікір мен тұтынушылардың қабылдауы, әсіресе биотехнологияға күмәнмен қарау басым өңірлерде, өнімнің нарыққа енуіне ықпал етуін жалғастыруда. SDN-1 арқылы енгізілген өзгерістердің қадағаланымдылығы мен анықталуы нормативтік және әдіснамалық қиындықтар туғызады, өйткені мұндай өзгерістерді табиғи мутациялардан ажырату мүмкін болмауы ықтимал. Зияткерлік меншікке қатысты мәселелер, оның ішінде CRISPR құралдары мен редакцияланған аллельдерге қатысты патенттер, шағын селекциялық бағдарламалар мен мемлекеттік мекемелер үшін қолжетімділікті шектеуі мүмкін.
Нысанадан тыс (off-target) әсерлер мұқият бағалауды талап етеді, алайда арпа мен бидай геномдары сияқты ірі әрі күрделі геномдарда жан-жақты талдау жүргізу қиынға соғады. Редакцияланған линияларды толық геномдық секвенирлеу ауқымды селекциялық бағдарламалар үшін әлі де қымбат болып қала береді, ал ұрпақтар бойында геномның тұрақтылығын қамтамасыз ету нормативтік мақұлдау және коммерциялық енгізу үшін аса қажет. ЖИ көмегімен нысанадан тыс сайттарды болжау және жоғары дәлдіктегі редакциялау жүйелері сияқты жетістіктер бұл мәселелерді жеңілдетеді деп күтілуде.
5. Conclusion 5. Заключение 5. Қорытынды
Targeted mutagenesis is poised to become a core technology in next-generation cereal breeding, enabling the development of cultivars with enhanced resilience, productivity, and suitability for diverse industrial applications. Because targeted mutagenesis can be applied directly to elite cultivars, the need for extensive backcrossing is greatly reduced, thereby shortening the breeding cycle. As transformation technologies, editing toolkits, and regulatory frameworks continue to advance, the integration of genome editing into commercial breeding programs is expected to accelerate further in the coming years.
Таргетный мутагенез призван стать одной из ключевых технологий селекции зерновых культур нового поколения, обеспечивая создание сортов с повышенной устойчивостью, продуктивностью и пригодностью для разнообразных промышленных применений. Поскольку таргетный мутагенез может применяться непосредственно к элитным сортам, потребность в многократных беккроссах существенно снижается, что сокращает селекционный цикл. По мере дальнейшего развития технологий трансформации, наборов инструментов редактирования и нормативной базы интеграция редактирования генома в коммерческие селекционные программы, как ожидается, будет и далее ускоряться в ближайшие годы.
Нысаналы мутагенез жаңа буын дәнді дақылдар селекциясының түйінді технологиясына айналуға дайын, себебі ол төзімділігі мен өнімділігі жоғары әрі әртүрлі өнеркәсіптік қажеттіліктерге бейімделген сорттарды жасауға мүмкіндік береді. Нысаналы мутагенезді элиталық сорттарға тікелей қолдануға болатындықтан, көп мәрте беккросс жүргізу қажеттілігі айтарлықтай азаяды және осы арқылы селекция циклі қысқарады. Трансформация технологиялары, редакциялау құралдары және нормативтік базалар дами түскен сайын, геномды редакциялауды коммерциялық селекциялық бағдарламаларға енгізу алдағы жылдары одан әрі жеделдейді деп күтілуде.
Data AvailabilityДоступность данныхДеректердің қолжетімділігі
No new data was generated.
Новые данные не создавались.
Жаңа деректер алынған жоқ.
FundingФинансированиеҚаржыландыру
This review was prepared without specific funding. The author's research activities are supported by the JSPS KAKENHI in Japan.
Настоящий обзор подготовлен без специального финансирования. Исследовательская деятельность автора поддерживается JSPS KAKENHI в Японии.
Бұл шолу арнайы қаржыландырусыз дайындалды. Автордың зерттеу жұмыстарын Жапониядағы JSPS KAKENHI қолдайды.
AcknowledgmentsБлагодарностиАлғыс сөздер
The author thanks colleagues at the Institute of Plant Science and Resources, Okayama University, and other collaborators for valuable discussions.
Автор выражает благодарность коллегам из Institute of Plant Science and Resources, Okayama University, а также другим участникам совместных исследований за ценные обсуждения.
Автор құнды пікірталастары үшін Окаяма университетінің Өсімдіктер ғылымы және ресурстары институтындағы әріптестеріне және басқа да ынтымақтастық серіктестеріне алғыс білдіреді.
Author ContributionsВклад авторовАвторлардың үлесі
Conceptualization, Investigation, and Writing: H.H.
Концепция, проведение исследования и написание текста: H.H.
Тұжырымдама, зерттеу және мәтінді жазу: H.H.
EthicsЭтикаЭтика
Not applicable.
Неприменимо.
Қолданылмайды.
Competing InterestsКонфликт интересовМүдделер қақтығысы
The author declares no competing interests.
Автор заявляет об отсутствии конфликта интересов.
Автор мүдделер қақтығысының жоқтығын мәлімдейді.
ReferencesЛитератураӘдебиеттер
- FAOSTAT Accessed on 17th August, 2026 https://www.fao.org/faostat/
- Puchta H, Fauser F (2014) Synthetic nucleases for genome engineering in plants: prospects for a bright future. The Plant Journal 78 (5):727-741. DOI: 10.1111/tpj.12338
- Beurdeley M, Bietz F, Li J, Thomas S, Stoddard T, Juillerat A, Zhang F, Voytas DF, Duchateau P, Silva GH (2013) Compact designer TALENs for efficient genome engineering. Nature Communications 4 (1):1762. DOI: 10.1038/ncomms2782
- Hisano H, Abe F, Hoffie RE, Kumlehn J (2021) Targeted genome modifications in cereal crops. Breeding Science 71 (4):405-416. DOI: 10.1270/jsbbs.21019
- Golla DA, Sun C, Haugh L, Straub N, Gao X (2026) Advances in multiplex precision genome editing in eukaryotic and prokaryotic systems. Current Opinion in Biotechnology 99:103470. DOI: 10.1016/j.copbio.2026.103470
- Ielanskyi M, Wang M, Scott L, Rieber L, Merrett S, Schimunek J, Mayr A, McDowell I, Klambauer G, Bowen T (2026) Machine learning-driven optimization of specific, compact, and efficient base editors via single-round diversification. Nucleic Acids Research 54 (11). DOI: 10.1093/nar/gkag545
- Kazama T, Okuno M, Watari Y, Yanase S, Koizuka C, Tsuruta Y, Sugaya H, Toyoda A, Itoh T, Tsutsumi N, Toriyama K, Koizuka N, Arimura S-i (2019) Curing cytoplasmic male sterility via TALEN-mediated mitochondrial genome editing. Nature Plants 5 (7):722-730. DOI: 10.1038/s41477-019-0459-z
- Nakazato I, Okuno M, Yamamoto H, Tamura Y, Itoh T, Shikanai T, Takanashi H, Tsutsumi N, Arimura S-i (2021) Targeted base editing in the plastid genome of Arabidopsis thaliana. Nature Plants 7 (7):906-913. DOI: 10.1038/s41477-021-00954-6
- Schindele P, Puchta H (2020) Engineering CRISPR/LbCas12a for highly efficient, temperature-tolerant plant gene editing. Plant Biotechnology Journal 18 (5):1118-1120. DOI: 10.1111/pbi.13275
- Saika H, Hara N, Yasumoto S, Muranaka T, Yoshimi K, Mashimo T, Toki S (2026) Versatile genome editing using Type I-E CRISPR-Cas3 in rice. Plant and Cell Physiology 67 (1):82-92. DOI: 10.1093/pcp/pcaf138
- Bandyopadhyay A, Kancharla N, Javalkote VS, Dasgupta S, Brutnell TP (2020) CRISPR-Cas12a (Cpf1): A Versatile Tool in the Plant Genome Editing Tool Box for Agricultural Advancement. Frontiers in Plant Science 11:584151. DOI: 10.3389/fpls.2020.584151
- de Pater S, Kamoen L, van Schendel R, Hooykaas PJJ, Tijsterman M (2024) Profiling Cas9- and Cas12a-induced mutagenesis in Arabidopsis thaliana. The Plant Journal 119 (6):2706-2717. DOI: 10.1111/tpj.16943
- Liu S, He Y, Fan T, Zhu M, Qi C, Ma Y, Yang M, Yang L, Tang X, Zhou J, Zhong Z, An X, Qi Y, Zhang Y (2025) PAM-relaxed and temperature-tolerant CRISPR-Mb3Cas12a single transcript unit systems for efficient singular and multiplexed genome editing in rice, maize, and tomato. Plant Biotechnology Journal 23 (1):156-173. DOI: 10.1111/pbi.14486
- Li Y, Huang B, Chen J, Huang L, Xu J, Wang Y, Cui G, Zhao H, Xin B, Song W, Zhu J-K, Lai J (2023) Targeted large fragment deletion in plants using paired crRNAs with type I CRISPR system. Plant Biotechnology Journal 21 (11):2196-2208. DOI: 10.1111/pbi.14122
- Molla KA, Sretenovic S, Bansal KC, Qi Y (2021) Precise plant genome editing using base editors and prime editors. Nature Plants 7 (9):1166-1187. DOI: 10.1038/s41477-021-00991-1
- Lin Q, Zong Y, Xue C, Wang S, Jin S, Zhu Z, Wang Y, Anzalone AV, Raguram A, Doman JL, Liu DR, Gao C (2020) Prime genome editing in rice and wheat. Nature Biotechnology 38 (5):582-585. DOI: 10.1038/s41587-020-0455-x
- Kor SD, Chowdhury N, Keot AK, Yogendra K, Chikkaputtaiah C, Sudhakar Reddy P (2023) RNA Pol III promoters—key players in precisely targeted plant genome editing. Frontiers in Genetics Volume 13 - 2022. DOI: 10.3389/fgene.2022.989199
- Grützner R, Martin P, Horn C, Mortensen S, Cram EJ, Lee-Parsons CWT, Stuttmann J, Marillonnet S (2021) High-efficiency genome editing in plants mediated by a Cas9 gene containing multiple introns. Plant Communications 2 (2). DOI: 10.1016/j.xplc.2020.100135
- Cong L, Ran FA, Cox D, Lin S, Barretto R, Habib N, Hsu PD, Wu X, Jiang W, Marraffini LA, Zhang F (2013) Multiplex Genome Engineering Using CRISPR/Cas Systems. Science 339 (6121):819-823. DOI: 10.1126/science.1231143
- Xie K, Minkenberg B, Yang Y (2015) Boosting CRISPR/Cas9 multiplex editing capability with the endogenous tRNA-processing system. Proceedings of the National Academy of Sciences 112 (11):3570-3575. DOI: 10.1073/pnas.1420294112
- Svitashev S, Schwartz C, Lenderts B, Young JK, Mark Cigan A (2016) Genome editing in maize directed by CRISPR–Cas9 ribonucleoprotein complexes. Nature Communications 7 (1):13274. DOI: 10.1038/ncomms13274
- Liang Z, Chen K, Li T, Zhang Y, Wang Y, Zhao Q, Liu J, Zhang H, Liu C, Ran Y, Gao C (2017) Efficient DNA-free genome editing of bread wheat using CRISPR/Cas9 ribonucleoprotein complexes. Nature Communications 8 (1):14261. DOI: 10.1038/ncomms14261
- Ali Z, Abul-faraj A, Li L, Ghosh N, Piatek M, Mahjoub A, Aouida M, Piatek A, Baltes Nicholas J, Voytas Daniel F, Dinesh-Kumar S, Mahfouz Magdy M (2015) Efficient Virus-Mediated Genome Editing in Plants Using the CRISPR/Cas9 System. Molecular Plant 8 (8):1288-1291. DOI: 10.1016/j.molp.2015.02.011
- Sherkatghanad Z, Abdar M, Charlier J, Makarenkov V (2023) Using traditional machine learning and deep learning methods for on- and off-target prediction in CRISPR/Cas9: a review. Briefings in Bioinformatics 24 (3). DOI: 10.1093/bib/bbad131
- Hisano H, Sato K (2016) Genomic regions responsible for amenability to Agrobacterium-mediated transformation in barley. Scientific Reports 6:37505. DOI: 10.1038/srep37505
- Hisano H, Meints B, Moscou MJ, Cistue L, Echávarri B, Sato K, Hayes PM (2017) Selection of transformation-efficient barley genotypes based on TFA (transformation amenability) haplotype and higher resolution mapping of the TFA loci. Plant cell reports 36 (4):611-620. DOI: 10.1007/s00299-017-2107-2
- Hisano H, Sakai H, Hamaoka M, Munemori H, Abe F, Meints B, Sato K, Hayes PM (2025) Rapid development of naked malting barley germplasm through targeted mutagenesis. Molecular Breeding 45 (3):32. DOI: 10.1007/s11032-025-01553-5
- Han Y, Broughton S, Liu L, Zhang X-Q, Zeng J, He X, Li C (2021) Highly efficient and genotype-independent barley gene editing based on anther culture. Plant Communications 2 (2). DOI: 10.1016/j.xplc.2020.100082
- He X, Huang D, Yao J, Gu Z, Cai S, Shen Q, Zhang G, Ye L (2025) Co-expression of growth regulator genes HvWUS and HvBBM2 enhances barley transformation efficiency. Plant Physiology 199 (2). DOI: 10.1093/plphys/kiaf494
- Woo JW, Kim J, Kwon SI, Corvalán C, Cho SW, Kim H, Kim S-G, Kim S-T, Choe S, Kim J-S (2015) DNA-free genome editing in plants with preassembled CRISPR-Cas9 ribonucleoproteins. Nature Biotechnology 33 (11):1162-1164. DOI: 10.1038/nbt.3389
- Wendt T, Holm PB, Starker CG, Christian M, Voytas DF, Brinch-Pedersen H, Holme IB (2013) TAL effector nucleases induce mutations at a pre-selected location in the genome of primary barley transformants. Plant Molecular Biology 83 (3):279-285. DOI: 10.1007/s11103-013-0078-4
- Lawrenson T, Shorinola O, Stacey N, Li C, Østergaard L, Patron N, Uauy C, Harwood W (2015) Induction of targeted, heritable mutations in barley and Brassica oleracea using RNA-guided Cas9 nuclease. Genome Biology 16 (1):258. DOI: 10.1186/s13059-015-0826-7
- Wang Y, Cheng X, Shan Q, Zhang Y, Liu J, Gao C, Qiu J-L (2014) Simultaneous editing of three homoeoalleles in hexaploid bread wheat confers heritable resistance to powdery mildew. Nature Biotechnology 32 (9):947-951. DOI: 10.1038/nbt.2969
- Koide H, Hisano H, Yaeno T (2023) CRISPR/Cas9-based generation of mlo mutants for allelic complementation experiments to elucidate MLO function in barley. Journal of General Plant Pathology 89 (3):153-158. DOI: 10.1007/s10327-023-01120-w
- Galli M, Martiny E, Imani J, Kumar N, Koch A, Steinbrenner J, Kogel K-H (2022) CRISPR/SpCas9-mediated double knockout of barley Microrchidia MORC1 and MORC6a reveals their strong involvement in plant immunity, transcriptional gene silencing and plant growth. Plant Biotechnology Journal 20 (1):89-102. DOI: 10.1111/pbi.13697
- Brauer EK, Balcerzak M, Rocheleau H, Leung W, Schernthaner J, Subramaniam R, Ouellet T (2020) Genome Editing of a Deoxynivalenol-Induced Transcription Factor Confers Resistance to Fusarium graminearum in Wheat. Molecular Plant-Microbe Interactions 33 (3):553-560. DOI: 10.1094/mpmi-11-19-0332-r
- Kis A, Hamar É, Tholt G, Bán R, Havelda Z (2019) Creating highly efficient resistance against wheat dwarf virus in barley by employing CRISPR/Cas9 system. Plant Biotechnol J 17 (6):1004-1006. DOI: 10.1111/pbi.13077
- Hisano H, Hoffie RE, Abe F, Munemori H, Matsuura T, Endo M, Mikami M, Nakamura S, Kumlehn J, Sato K (2022) Regulation of germination by targeted mutagenesis of grain dormancy genes in barley. Plant Biotechnology Journal 20 (1):37-46. DOI: 10.1111/pbi.13692
- Cheng J, Jia Y, Hill C, He T, Wang K, Guo G, Shabala S, Zhou M, Han Y, Li C (2024) Diversity of Gibberellin 2-oxidase genes in the barley genome offers opportunities for genetic improvement. Journal of Advanced Research 66:105-118. DOI: 10.1016/j.jare.2023.12.021
- Xie S, Wang F, Li M, Hu Z, Wang H, Zhang Z, Chen X, Gu Z, Zhang G, Ye L (2024) Enhancing barley yield potential and germination rate: gene editing of HvGA20ox2 and discovery of novel allele sdw1.ZU9. The Plant Journal 119 (2):814-827. DOI: 10.1111/tpj.16798
- Karunarathne SD, Han Y, Zhang X-Q, Li C (2022) CRISPR/Cas9 gene editing and natural variation analysis demonstrate the potential for HvARE1 in improvement of nitrogen use efficiency in barley. Journal of Integrative Plant Biology 64 (3):756-770. DOI: 10.1111/jipb.13214
- Sánchez-León S, Gil-Humanes J, Ozuna CV, Giménez MJ, Sousa C, Voytas DF, Barro F (2018) Low-gluten, nontransgenic wheat engineered with CRISPR/Cas9. Plant Biotechnology Journal 16 (4):902-910. DOI: 10.1111/pbi.12837
- Jouanin A, Schaart JG, Boyd LA, Cockram J, Leigh FJ, Bates R, Wallington EJ, Visser RGF, Smulders MJM (2019) Outlook for coeliac disease patients: towards bread wheat with hypoimmunogenic gluten by gene editing of α- and γ-gliadin gene families. BMC Plant Biology 19 (1):333. DOI: 10.1186/s12870-019-1889-5
- Marín-Sanz M, Sánchez-León S, Guzmán-López MH, Starker CG, Voytas DF, Barro F (2025) Cas9- and Cas12a-mediated excision and replacement of the celiac disease-related α-gliadin immunogenic complex in hexaploid wheat. Plant Biotechnology Journal 23 (9):3798-3813. DOI: 10.1111/pbi.70200
- Yang Q, Zhong X, Li Q, Lan J, Tang H, Qi P, Ma J, Wang J, Chen G, Pu Z, Li W, Lan X, Deng M, Harwood W, Li Z, Wei Y, Zheng Y, Jiang Q (2020) Mutation of the d-hordein gene by RNA-guided Cas9 targeted editing reducing the grain size and changing grain compositions in barley. Food Chemistry 311:125892. DOI: 10.1016/j.foodchem.2019.125892
- Li Y, Liu D, Zong Y, Jiang L, Xi X, Cao D, Shen Y, Zhang H, Liu B (2020) New D hordein alleles were created in barley using CRISPR/Cas9 genome editing. Cereal Research Communications 48 (2):131-138. DOI: 10.1007/s42976-020-00023-2
- Zeng Z, Han N, Liu C, Buerte B, Zhou C, Chen J, Wang M, Zhang Y, Tang Y, Zhu M, Wang J, Yang Y, Bian H (2020) Functional dissection of HGGT and HPT in barley vitamin E biosynthesis via CRISPR/Cas9-enabled genome editing. Annals of Botany 126 (5):929-942. DOI: 10.1093/aob/mcaa115
- Lee JH, Won HJ, Hoang Nguyen Tran P, Lee S-m, Kim H-Y, Jung JH (2021) Improving lignocellulosic biofuel production by CRISPR/Cas9-mediated lignin modification in barley. GCB Bioenergy 13 (4):742-752. DOI: 10.1111/gcbb.12808
- Sato K, Morita M, Yamaji N, Kako R, Ushijima T, Hisano H (2026) Cinnamyl alcohol dehydrogenase (CAD) underlies the orange lemma trait and lignin reduction in barley. Scientific Reports. DOI: 10.1038/s41598-026-59416-8
- Gu M, Huang H, Hisano H, Ding G, Huang S, Mitani-Ueno N, Yokosho K, Sato K, Yamaji N, Ma JF (2022) A crucial role for a node-localized transporter, HvSPDT, in loading phosphorus into barley grains. New Phytologist 234 (4):1249-1261. DOI: 10.1111/nph.18057
- Hisano H, Sakai H, Hamaoka M, Munemori H, Abe F, Meints B, Sato K, Hayes PM (2025) Rapid development of naked malting barley germplasm through targeted mutagenesis. Molecular Breeding 45 (3):32. DOI: 10.1007/s11032-025-01553-5
- Ishii T (2025) Consumer choices regarding genome-edited food crops: lessons from Japan. Frontiers in Genome Editing Volume 7 - 2025. DOI: 10.3389/fgeed.2025.1672358
- Mewett O, McMurdy J, Bertho L, Atanassova A, Stevens N, Huber S, Fedorova M, Diehl K, Zhao KT (2026) Re-evaluating the site-directed nuclease classification as a regulatory trigger for genome-edited plant products. Nature Biotechnology 44 (5):682-685. DOI: 10.1038/s41587-026-03028-0
- Sheridan C (2026) EU relaxes rules for gene-edited crops. Nature Biotechnology 44 (8):1245-1246. DOI: 10.1038/s41587-026-03264-4